
티스토리 뷰
포도당을 얻은 세균이라면 탄소 골격을 이산화탄소까지 분해해 에너지를 최대한 뽑아낼 것 같지만 Gluconobacter oxydans는 다른 길을 택한다. 이 세균은 포도당을 글루콘산과 케토글루콘산으로, 소르비톨을 소르보스로 바꾼 뒤 산화된 물질의 상당 부분을 배지에 남긴다. 산소를 사용하는 호흡 세균인데도 유기물을 완전히 태우지 않는 이 현상을 불완전 산화 또는 산화 발효라고 부른다. 현재 정명은 Gluconobacter oxydans (Henneberg 1897) De Ley 1961이며 초산균과에 속한다. LPSN과 NCBI Taxonomy가 제시하는 표준균주는 ATCC 19357, DSM 3503, LMG 1408 등이다.
당이 세포질에 들어가기 전에 산화가 시작된다
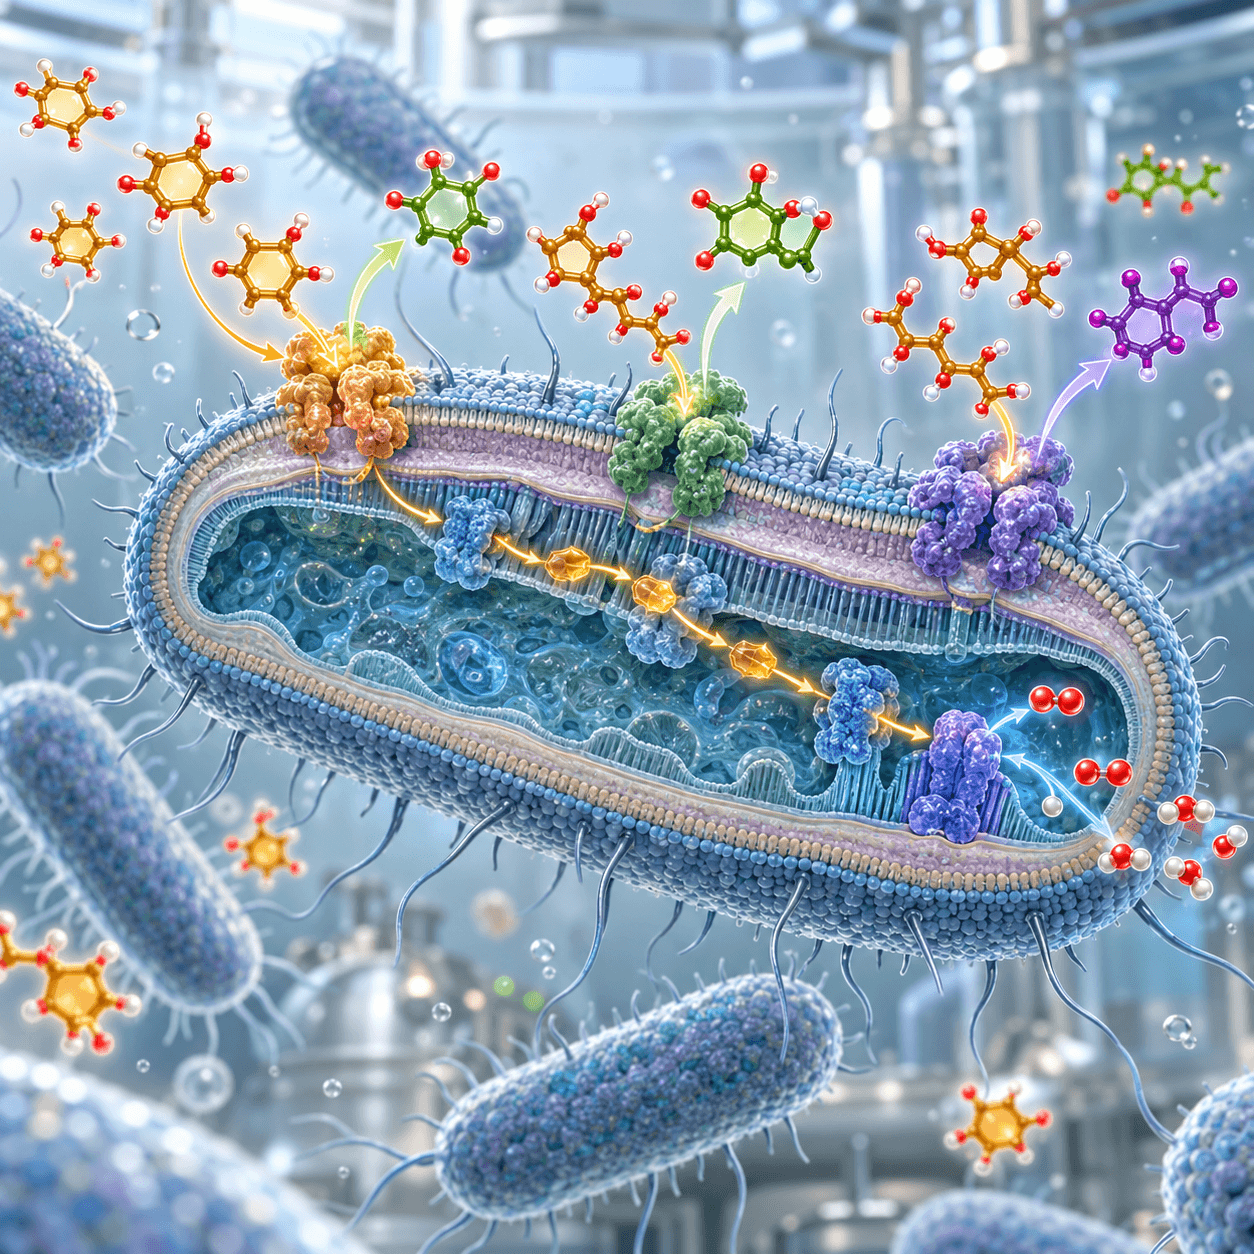
핵심 무대는 세포질이 아니라 세포막과 외막 사이의 주변질이다. G. oxydans의 세포막에는 촉매 부위가 주변질 쪽을 향한 막결합 탈수소효소가 여러 종류 박혀 있다. 포도당 탈수소효소는 포도당을 글루코노델타락톤으로 산화하고, 이 물질은 글루콘산으로 바뀐다. 이어 다른 탈수소효소가 글루콘산을 2-케토글루콘산이나 5-케토글루콘산으로 산화할 수 있다. 균주가 가진 효소의 종류와 활성에 따라 어느 산물이 많이 쌓이는지는 달라진다.
이 효소들 가운데 상당수는 피롤로퀴놀린퀴논, 줄여서 PQQ를 보조인자로 사용한다. 621H 균주의 pqqA 유전자를 망가뜨려 PQQ를 만들지 못하게 한 실험에서는 포도당, 만니톨, 글리세롤을 유일한 에너지원으로 주었을 때 자라지 못했다. 막결합 퀴노단백질이 이 물질들의 산화와 에너지 획득에서 실제로 중심 역할을 한다는 뜻이다. 다만 G. oxydans의 모든 막결합 탈수소효소가 PQQ 효소인 것은 아니며, FAD를 쓰는 효소도 존재한다.
전자만 호흡사슬로 보내 빠르게 에너지를 얻는다
불완전 산화는 발효처럼 보이지만 산소 없이 진행되는 전형적인 발효와는 다르다. 막결합 탈수소효소가 당이나 당알코올에서 뽑아낸 전자는 세포막의 유비퀴논으로 전달되고, 다시 말단 퀴놀 산화효소를 거쳐 산소로 이동한다. 이 전자 흐름은 막을 사이에 둔 양성자 기울기 형성에 기여하고 ATP 합성과 연결된다. 즉 세균은 기질의 탄소 골격을 모두 세포 안으로 들여와 여러 대사 단계를 거치지 않아도 표면 가까이에서 산화 반응을 일으켜 호흡 에너지를 얻을 수 있다.
이 방식은 한 분자에서 얻는 에너지를 최대화하는 전략이라기보다 많은 기질을 빠르게 처리하는 전략에 가깝다. 촉매 부위가 주변질에 있으므로 세포막을 통과시키기 어려운 물질도 곧바로 산화할 수 있고, 산화 산물은 주변 배지로 쉽게 빠져나간다. 그 결과 세포량은 많이 늘지 않아도 글루콘산이나 케토글루콘산 같은 산물이 높은 농도로 축적될 수 있다. 산소가 전자의 최종 수용체이므로 산소 공급 상태가 이 과정의 속도와 생성물 비율에 큰 영향을 준다.
여기서는 에너지원과 세포 재료가 완전히 같은 경로를 따르지 않는다. 많은 기질은 주변질에서 전자만 내준 뒤 산화 산물로 남고, 세포는 그중 일부만 안으로 들여보내 핵산과 단백질을 만드는 탄소원으로 쓴다. 그래서 기질 소비 속도와 세포 증식량이 반드시 비례하지 않는다. 배양액에 산화 산물이 쌓이면 산도가 변하고 효소별 반응 속도도 달라지므로, 산소 전달과 pH 조절은 원하는 물질을 많이 얻기 위한 중요한 조건이 된다.
중심대사가 완전 산화를 밀어붙이는 구조가 아니다
주변질에서 나온 산물이 모두 버려지는 것은 아니다. 일부는 수송체를 통해 세포질로 들어가 생합성 재료가 되거나 오탄당인산경로와 엔트너두도로프 경로를 통해 분해된다. 그러나 621H 균주의 유전체에는 일반적인 해당과정의 핵심 효소인 포스포프럭토키네이스 유전자가 없고, TCA 회로도 석신산 탈수소효소 단계가 빠져 있다. 따라서 대장균처럼 해당과정과 완전한 TCA 회로를 연속해서 돌려 탄소를 효율적으로 완전 산화하는 구성과는 차이가 있다.
그렇다고 불완전한 중심대사 하나만을 원인으로 보는 것도 정확하지 않다. 이 세균의 특징은 주변질 산화 장치, 호흡사슬, 제한된 세포질 탄소 대사가 함께 맞물린 결과이다. 포도당은 글루콘산을 거쳐 여러 케토산으로 연속 산화될 수 있고, 특정 산물은 다시 세포 안에서 이용되기도 한다. 완전 산화를 못 해서 반응이 멈춘다기보다 세포막에서 전자를 먼저 회수하고 탄소가 남은 산물을 바깥에 축적하는 쪽으로 대사 체계가 조직돼 있다고 보는 편이 알맞다.
남겨진 산화 산물이 산업에서는 원하는 제품이 된다
G. oxydans가 남긴 산물은 미생물에게 덜 분해된 찌꺼기일 수 있지만 산업에서는 유용한 중간체가 된다. 막결합 소르비톨 탈수소효소는 D-소르비톨을 L-소르보스로 바꾸며, L-소르보스는 비타민 C 제조 공정의 중요한 중간체이다. 글리세롤에서는 다이하이드록시아세톤을 만들 수 있고, 포도당 산화에서는 글루콘산과 2-케토글루콘산, 5-케토글루콘산 같은 물질을 얻을 수 있다. 효소의 입체선택성과 위치선택성이 높아 화학 합성에서 여러 단계를 거칠 변환을 온화한 조건에서 수행할 수 있다는 장점도 있다.
다만 한 균주에서 확인한 생성물 비율이나 효소 활성을 G. oxydans 전체의 고정된 성질로 일반화하면 안 된다. 산업 균주와 대표 연구 균주 621H는 막결합 탈수소효소의 구성과 발현, 산소 요구량이 다를 수 있으며 배양 조건도 최종 산물을 바꾼다. 내가 이 세균에서 가장 흥미롭다고 보는 점은 에너지를 끝까지 짜내지 않는 대사가 비효율의 흔적만은 아니라는 사실이다. 세균에게는 빠른 호흡 전략이고 사람에게는 산화 중간체를 회수하는 생산 기술이 되므로, 효율은 무엇을 목표로 측정하느냐에 따라 전혀 다르게 보인다.
참고자료
- LPSN. Gluconobacter oxydans (Henneberg 1897) De Ley 1961 (Approved Lists 1980).
- NCBI Taxonomy. Gluconobacter oxydans. Taxonomy ID 442.
- Prust C, Hoffmeister M, Liesegang H, et al. Complete genome sequence of the acetic acid bacterium Gluconobacter oxydans. Nature Biotechnology. 2005;23(2):195-200. doi:10.1038/nbt1062.
- Hölscher T, Görisch H. Knockout and Overexpression of Pyrroloquinoline Quinone Biosynthetic Genes in Gluconobacter oxydans 621H. Journal of Bacteriology. 2006;188(21):7668-7676. doi:10.1128/JB.01009-06.
- Kataoka N. Ketogluconate production by Gluconobacter strains: enzymes and biotechnological applications. Bioscience, Biotechnology, and Biochemistry. 2024;88(5):499-508. doi:10.1093/bbb/zbae013.
'박테리아' 카테고리의 다른 글
| 해저 퇴적물의 전선을 만드는 Candidatus Electrothrix aarhusensis의 전자 전달 (0) | 2026.10.15 |
|---|---|
| Bacillus subtilis는 영양분이 부족해지면 어떻게 내생포자를 만들까? (0) | 2026.10.14 |
| 소금 호수의 붉은 세균 Salinibacter ruber는 빛으로 에너지를 얻을 수 있을까? (0) | 2026.10.13 |
| 여름철 바닷물의 Vibrio vulnificus는 언제 사람에게 위험해질까? (0) | 2026.10.12 |
| 화산성 산성 온천에서 Methylacidiphilum fumariolicum이 메탄을 먹는 방법 (0) | 2026.10.11 |