
티스토리 뷰
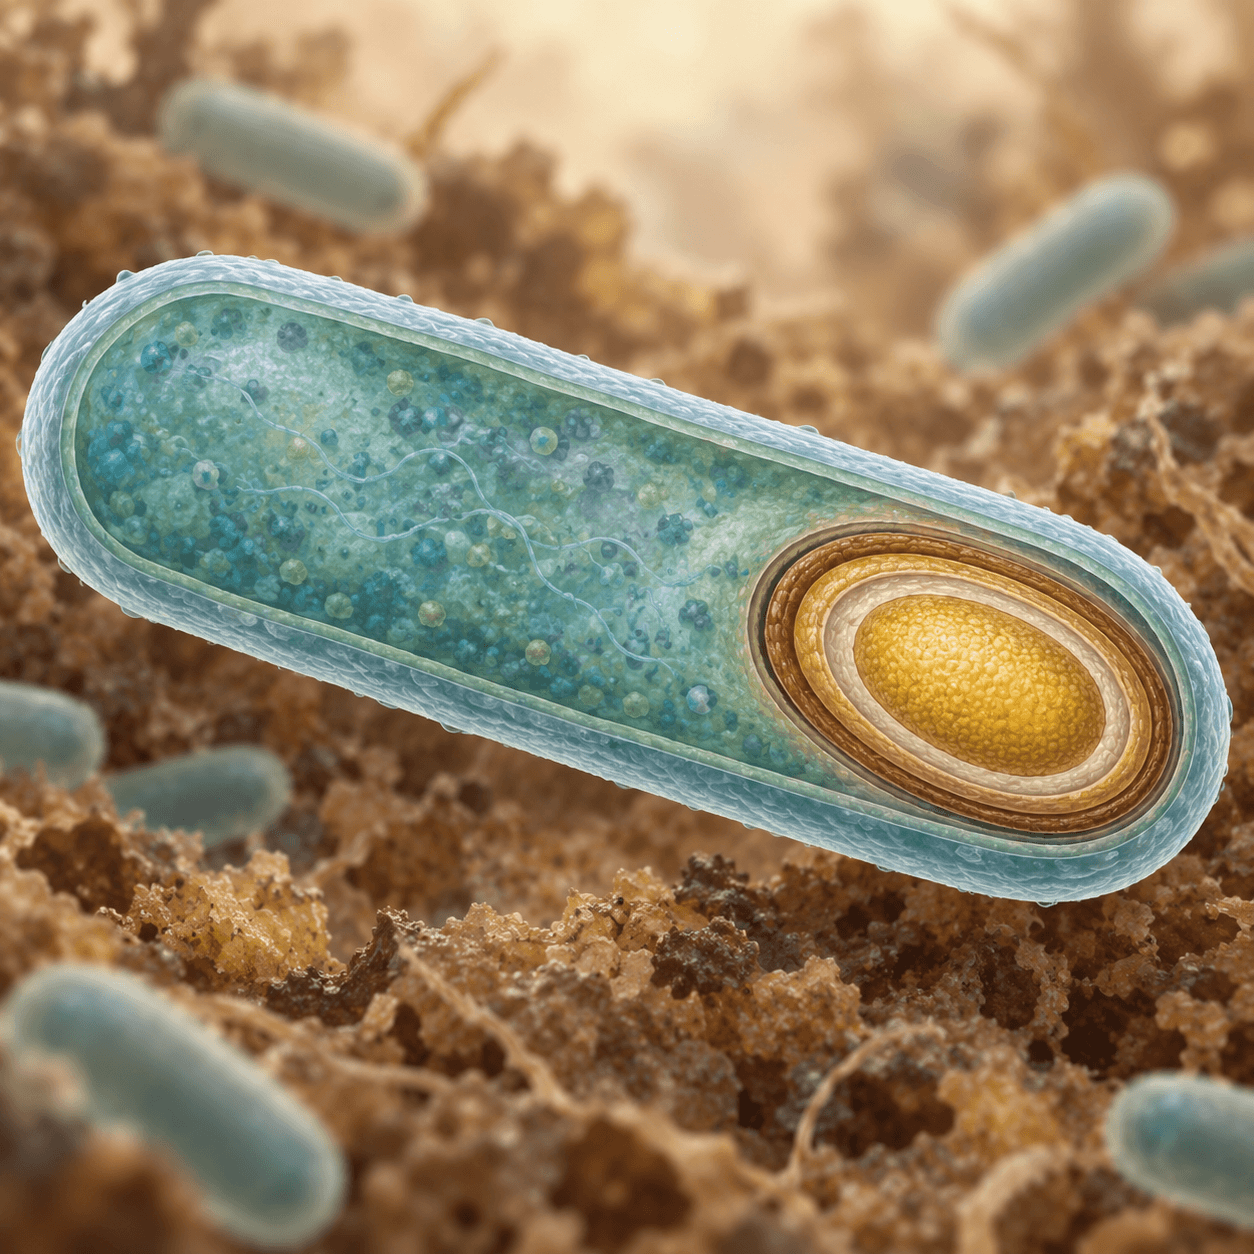
먹이가 줄어든 세균은 계속 분열할 수 없다. 그렇다고 주변 환경이 나빠지는 순간 모두 죽는 것은 아니다. Bacillus subtilis는 조건에 따라 세포 안에 내생포자를 만들어 휴면 상태로 전환한다. 평소처럼 영양분을 소비하며 성장하는 대신, 유전정보와 생존에 필요한 구성요소를 보호하고 환경이 달라질 때를 기다리는 방식이다.
여기서 포자는 곰팡이가 번식을 위해 만드는 포자와 구분해야 한다. Bacillus subtilis의 전형적인 내생포자 형성에서는 하나의 세포가 하나의 포자를 남긴다. 개체 수를 늘리는 과정이 아니라 생존 형태를 바꾸는 과정이다. 이름에 붙은 내생이라는 표현도 세포 내부에서 만들어진다는 뜻이다. 이 작은 구조가 완성되기까지는 세포 분열 위치, 유전자 작동, 막과 세포벽의 배치가 함께 바뀐다.
굶주림은 신호이고 포자 형성은 조절된 선택이다
Bacillus subtilis는 흔히 고초균이라고 부르는 막대 모양 세균이다. 현재 LPSN과 NCBI Taxonomy에서도 이 학명을 사용한다. 포자 형성 연구에 널리 쓰이는 실험실 계통과 자연에서 분리한 균주는 유전적 배경이 다를 수 있으므로, 특정 실험의 결과를 모든 균주에 똑같이 적용해서는 안 된다. 이 글은 주로 실험실에서 밝혀진 대표적인 발생 과정을 설명한다.
영양분 부족은 포자 형성을 유도하는 중요한 조건이지만, 먹이가 조금 줄었다고 모든 세포가 즉시 포자가 되는 것은 아니다. 세포는 영양 상태와 주변 세포에서 오는 신호, 자신의 성장 상태 등을 조절망에 통합한다. 그 중심에 Spo0A라는 단백질이 있다. 인산기를 전달하는 조절계를 거쳐 활성화된 Spo0A는 포자 형성에 필요한 유전자들의 발현을 바꾼다.
이 과정은 세균이 상황을 생각해서 판단한다는 뜻이 아니다. 신호에 반응하는 단백질과 유전자 조절의 결과이다. 같은 환경에서도 개별 세포의 조절 상태가 달라 포자 형성을 시작하는 시점이 달라질 수 있다. 포자를 만드는 동안에도 막과 단백질을 합성할 자원이 필요하므로, 포자 형성은 모든 활동을 갑자기 멈추는 것과도 다르다. 휴면에 들어가기 전에 오히려 정교한 구조를 만들어야 한다.
같은 크기로 나뉘던 세포가 서로 다른 두 구획을 만든다
성장 중인 Bacillus subtilis는 보통 세포 가운데에 분열면을 만들어 두 딸세포로 나뉜다. 포자 형성에서는 분열면이 한쪽 끝에 가까운 위치에 생긴다. 그 결과 작은 전포자와 큰 모세포가 만들어진다. 전포자는 앞으로 내생포자가 될 구획이며, 모세포는 그 전포자의 발달을 지원하는 구획이다. 두 구획의 크기뿐 아니라 앞으로 수행할 역할도 달라지는 비대칭 분열이다.
작은 전포자에 완전한 유전정보를 전달하는 과정도 필요하다. 분열막이 만들어질 때 염색체의 일부만 전포자 쪽에 들어가 있는 경우, SpoIIIE라는 단백질이 나머지 DNA를 이동시킨다. 이후 전포자와 모세포에서는 서로 다른 유전자 집합이 작동한다. 양쪽 구획 사이의 신호 교환은 한쪽의 발달 단계와 다른 쪽의 작업을 맞추는 데 기여한다. 같은 유전체를 지닌 두 구획이 서로 다른 일을 하는 세포 분화의 사례인 셈이다.
다음에는 모세포의 막이 전포자 주변으로 이동해 전포자를 감싼다. 이때 세포벽 성분의 합성과 분해가 조절되어 막이 전포자 둘레를 따라 진행할 수 있다. 감싸기가 끝난 전포자는 모세포 내부에 놓이며 두 겹의 막으로 둘러싸인다. 단순히 작은 세포를 큰 세포 안에 넣는 그림으로 보이지만, 실제로는 막의 형태와 세포벽의 배치를 바꾸는 여러 단백질이 관여한다.
전포자는 완성 전까지 모세포의 도움도 받는다. 2025년 연구는 대사 모델과 세포 구획별 단백질 조절 실험을 결합해 모세포가 전포자에 뉴클레오타이드 등 필요한 물질을 공급한다는 해석을 뒷받침했다. 연구진은 두 구획을 연결하는 통로와 대사 효소의 역할을 함께 분석했다. 다만 어떤 물질이 어떤 경로로 이동하는지 전부 직접 관찰한 것은 아니므로, 모세포가 전포자를 지원한다는 결론과 세부 운반 경로에 관한 모델의 예측은 구분해야 한다.
단단한 껍질만으로 버티는 것이 아니다
감싸기가 끝났다고 포자가 곧바로 완성되는 것은 아니다. 두 막 사이에는 특별한 펩티도글리칸 층인 피질이 발달하고, 바깥쪽에는 여러 단백질로 이루어진 포자 외피가 조립된다. 펩티도글리칸은 세균 세포벽의 주요 성분이지만, 포자 피질은 성장 중인 세포벽과 구성 및 기능이 다르다. 외피 역시 한 장의 균일한 껍질이라기보다 여러 층과 단백질이 조직된 보호 구조이다.
포자 중심부에서는 수분 함량이 낮아지고 칼슘과 결합한 디피콜린산이 축적된다. DNA에 결합하는 작은 산 가용성 포자 단백질도 유전정보 보호에 기여한다. 외피, 피질, 내부 막, 중심부의 낮은 수분 상태가 서로 다른 역할을 하며 저항성을 만든다. 따라서 내생포자의 생존력을 껍질 두께 하나로 설명하면 중심부의 화학적 상태와 막의 성질을 놓치게 된다.
보호 효과가 있다고 해서 모든 자극을 무조건 견딘다는 뜻은 아니다. 열, 건조, 화학물질, 압력에 대한 반응은 같지 않으며 균주와 포자 형성 조건에도 영향을 받는다. 2026년의 고압 처리 연구에서도 외피와 피질 등의 구조를 바꾼 포자는 처리 압력에 따라 발아와 불활성화 양상이 달라졌다. 특정 구조가 손상되면 모든 조건에서 일률적으로 약해진다고 단정하기 어려운 결과이다.
성숙이 끝나면 모세포가 용해되고 포자가 밖으로 방출된다. 모세포는 계속 살아서 포자를 돌보는 존재로 남지 않는다. 마지막에 남는 것은 성장과 분열을 크게 억제한 휴면 구조이다. 이 과정에서 중요한 것은 강한 외피를 만드는 일뿐 아니라, 그 안에 다시 활동할 수 있는 생물학적 기반을 보존하는 일이다.
환경이 좋아지면 보호 구조를 풀고 다시 성장한다
포자가 환경 변화를 감지하는 장치까지 없애 버린다면 살아남아도 다시 성장할 수 없다. Bacillus subtilis 포자는 특정 영양 신호를 감지하는 발아 수용체 등을 유지한다. 적절한 신호가 들어오면 이온과 디피콜린산의 방출, 피질 분해, 중심부의 재수화 같은 변화가 진행된다. 보호에 유리했던 상태를 풀어야 대사와 성장을 다시 이어 갈 수 있는 것이다.
이때 발아와 이후의 성장은 구분해야 한다. 발아는 휴면 상태에서 벗어나는 초기 변화이고, 뒤이어 세포 구성요소를 정비하고 막대 모양 영양세포로 자라는 과정이 이어진다. 초기 발아 신호에 반응했다고 반드시 정상적인 성장까지 완료하는 것은 아니다. 실제로 포자 내부의 효소 구성을 바꾼 실험에서는 발아를 시작했지만 이후 성장하지 못하는 경우가 관찰되었다. 포자를 잘 만드는 능력과 다시 자라는 능력은 연결되어 있으면서도 동일한 지표는 아니다.
나는 이 세균을 설명할 때 저항성보다 전환 과정에 더 주목할 필요가 있다고 본다. 단단한 포자를 만든다는 사실만 외우면 세균이 굶주림 속에서 세포의 역할을 나누고, 보호 구조와 복귀 장치를 함께 준비한다는 핵심을 놓치기 쉽다. 하나의 세포가 자신을 늘리는 대신 다음 성장의 가능성을 남긴다는 관점으로 보면, 내생포자는 단순한 껍질이 아니라 세균의 생활방식 전체가 바뀐 결과로 이해된다.
참고자료
LPSN. Bacillus subtilis 학명 및 명명 상태.
'박테리아' 카테고리의 다른 글
| 해저 퇴적물의 전선을 만드는 Candidatus Electrothrix aarhusensis의 전자 전달 (0) | 2026.10.15 |
|---|---|
| 소금 호수의 붉은 세균 Salinibacter ruber는 빛으로 에너지를 얻을 수 있을까? (0) | 2026.10.13 |
| 여름철 바닷물의 Vibrio vulnificus는 언제 사람에게 위험해질까? (0) | 2026.10.12 |
| 화산성 산성 온천에서 Methylacidiphilum fumariolicum이 메탄을 먹는 방법 (0) | 2026.10.11 |
| 피부에 사는 Cutibacterium acnes는 왜 어떤 사람에게만 여드름을 일으킬까? (0) | 2026.10.10 |