
티스토리 뷰
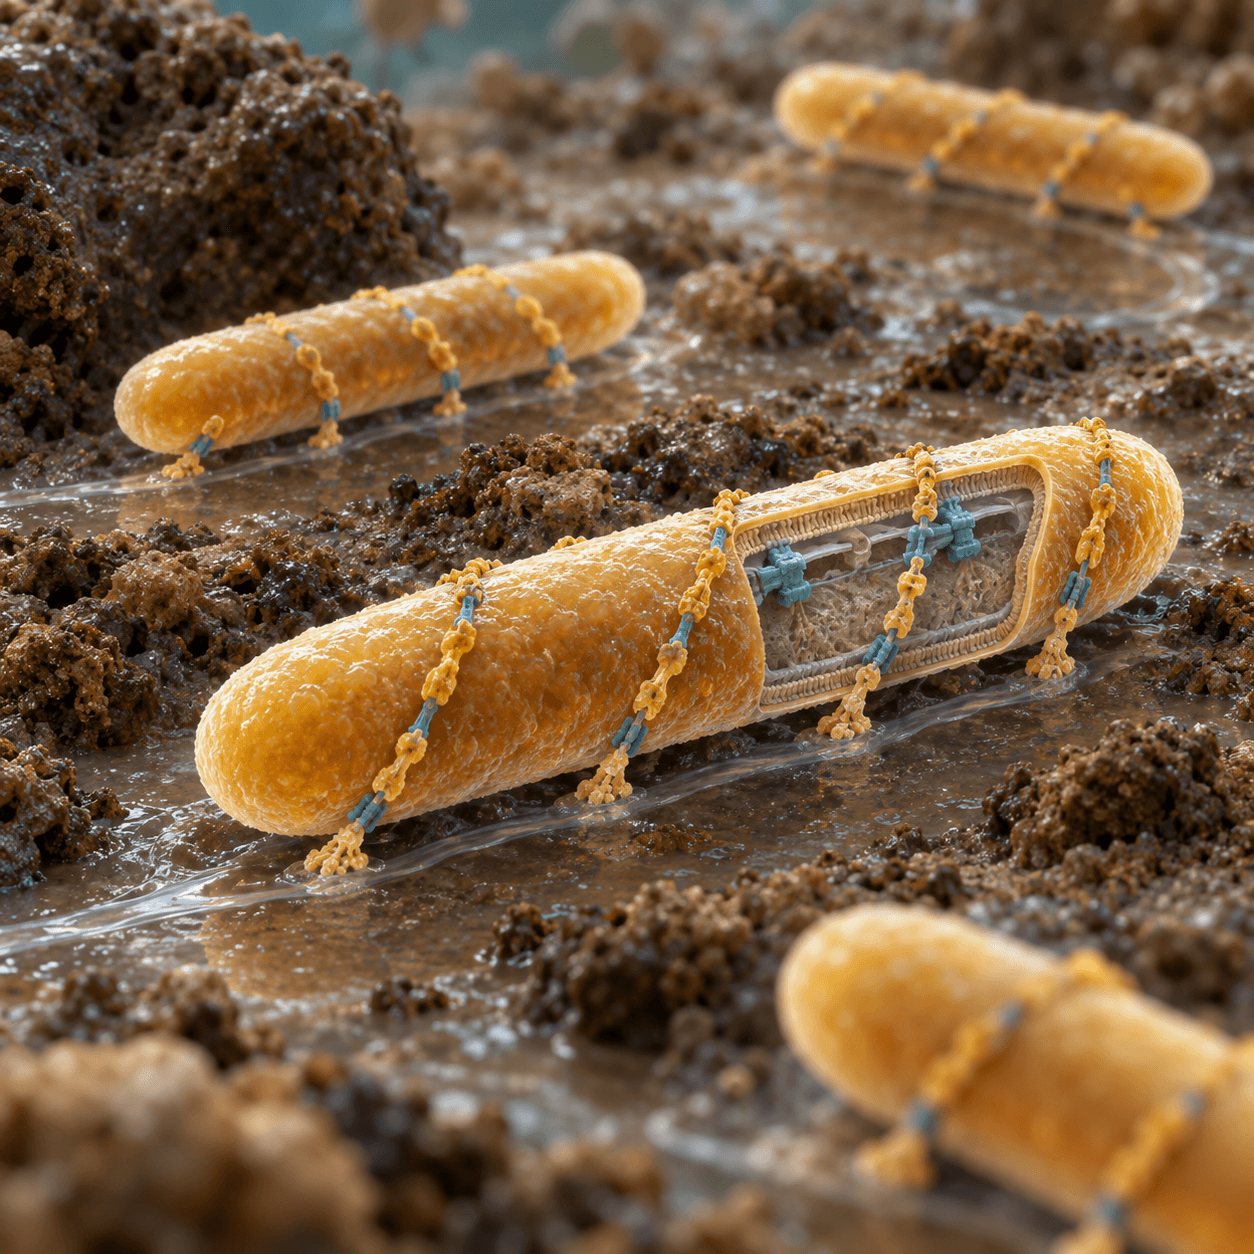
막대 모양 세균이 유리나 한천 표면을 초당 약 2 마이크로미터 속도로 지나가는데, 몸 밖에는 회전하는 편모도 뻗었다 당기는 섬모도 보이지 않는다. Flavobacterium johnsoniae UW101이 보여주는 활주운동이다. 액체 속을 자유롭게 헤엄치는 운동과 달리 세포가 고체 표면에 닿아 있을 때 나타나며, 세포 표면의 접착 단백질을 움직이는 독자적인 장치가 추진력을 만든다.
이 세균은 과거 Cytophaga johnsonae로 불렸고 1996년 Flavobacterium johnsoniae로 재분류됐다. 현재 LPSN에서 정명은 F. johnsoniae subsp. johnsoniae이며, 실험에 널리 쓰이는 UW101은 ATCC 17061, DSM 2064 등으로 기탁된 표준 균주 계통이다. 토양과 담수에서 발견되는 산소성 종속영양세균으로, 키틴을 비롯한 물에 잘 녹지 않는 고분자를 분해하는 능력 때문에 이동과 영양 획득을 함께 연구하는 모델이 됐다.
긴 접착 단백질이 세포 표면을 순환한다
운동의 핵심 부품 가운데 하나는 SprB라는 거대한 세포표면 단백질이다. SprB는 바깥막에 고정된 채 한 자리에 머무르지 않고 세포의 긴 축을 따라 나선형 경로로 이동한다. 형광 표지를 붙여 관찰하면 한쪽 끝으로 간 단백질이 방향을 바꾸어 반대쪽으로 돌아오는 흐름이 보인다. 길이 약 6 마이크로미터인 세포에서 SprB는 초당 수 마이크로미터의 속도로 움직일 수 있다.
SprB가 유리나 한천 같은 바닥에 붙으면 상황이 뒤집힌다. 바닥에 붙은 접착점은 움직이기 어렵지만 세포의 운동 장치는 SprB를 계속 뒤로 보내려 한다. 그 반작용으로 세포 몸체가 앞으로 밀린다. 여러 SprB가 차례로 표면을 붙잡고 놓으면서 무한궤도처럼 추진력이 이어진다는 설명이다. 접착점의 위치가 나선형으로 이동하기 때문에 세포는 곧게 전진하기만 하지 않고 긴 축을 중심으로 구르거나 방향을 바꿀 수 있다.
SprB 하나만으로 모든 표면을 다루는 것은 아니다. RemA는 다당류에 결합하는 렉틴 성질을 가진 또 다른 이동성 접착 단백질이며, UW101 유전체에는 SprB와 닮은 단백질을 만드는 유전자도 여러 개 있다. 표면의 화학 조성이 달라질 때 서로 다른 접착 단백질이 역할을 나눌 가능성이 있지만, 각 단백질이 자연의 어떤 재료를 선택하는지는 모두 밝혀지지 않았다.
세포막의 양성자 흐름이 회전력을 만든다
접착 단백질을 움직이는 에너지는 세포질막 안팎의 양성자 농도 차이에서 나온다. 호흡으로 형성한 양성자 구동력이 사라지면 SprB의 이동과 세포 활주가 멈춘다. GldL과 GldM은 세포질막을 가로지르는 모터 복합체의 중심이며, 양성자가 막을 통과할 때 회전한다. 2015년에는 표면에 붙잡힌 세포가 몸 전체를 회전시키는 장면이 관찰돼 회전 모터의 존재가 직접 뒷받침됐다.
회전 운동이 세포 바깥쪽의 직선 이동으로 바뀌는 정확한 연결 구조는 계속 다듬어지고 있다. 현재 모델에서는 여러 모터가 바깥막 아래의 나선형 트랙과 맞물리고, 트랙을 따라 움직이는 화물처럼 SprB를 운반한다. 하나의 중앙 모터가 세포 전체를 끄는 방식이 아니라 세포 길이를 따라 흩어진 동력 장치가 여러 접착 단백질에 힘을 전달하는 셈이다.
이 설명은 편모 운동과도 다르다. 편모에서는 모터가 세포 밖의 긴 필라멘트 자체를 회전시켜 액체를 민다. F. johnsoniae에서는 눈에 띄는 외부 추진체 없이 표면 단백질이 세포 외피 위를 달리고, 바닥과의 마찰이 있을 때만 순환 운동이 세포 이동으로 바뀐다. 따라서 물속에 떠 있는 세포가 활주 장치만으로 빠르게 헤엄친다고 말할 수는 없다.
제9형 분비계는 운동 부품과 분해효소를 밖으로 보낸다
SprB는 세포질에서 만들어진 뒤 여러 막을 지나 바깥 표면에 배치돼야 한다. 이 일을 맡는 장치가 제9형 분비계, T9SS다. GldK, GldL, GldM, GldN, SprA 등으로 이루어진 분비 장치에 결함이 생기면 SprB와 RemA가 정상적으로 표면에 나오지 못해 활주가 약해진다. 운동 장치의 일부 유전자가 단백질 분비에도 필요한 이유가 여기 있다.
T9SS는 이동 단백질만 내보내지 않는다. UW101은 키틴을 자르는 ChiA를 이 통로로 세포 밖에 분비한다. ChiA가 결핍된 돌연변이는 키틴 분해 능력이 크게 떨어졌지만 활주운동 자체는 유지됐다. 반대로 일부 돌연변이는 SprB를 분비하면서도 표면에서 움직이지 못했다. 이런 분리 실험은 분비와 추진이 긴밀히 연결돼 있어도 동일한 과정은 아니라는 점을 보여준다.
UW101의 원형 염색체는 약 610만 염기쌍이며, 2009년 유전체 분석에서는 138개의 당질가수분해효소와 9개의 다당류분해효소 후보가 예측됐다. 실제 배양에서도 키틴뿐 아니라 자일란, 만난, 자일로글루칸 같은 여러 다당류를 이용했다. 유전체에 효소 후보가 있다는 사실과 모든 자연 기질에서 같은 속도로 분해한다는 주장은 구분해야 하지만, 표면을 돌아다니며 고분자 가까이에 효소를 배치하는 생활방식은 분명하다.
이동은 먹이를 찾는 일과 어디까지 연결될까?
흙이나 수중 입자에 붙은 키틴은 녹아 있는 당처럼 세포 안으로 바로 들어오지 않는다. 세균은 표면에 접근해 효소로 고분자를 잘게 자르고, 생성된 올리고당을 바깥막 수송체로 받아들여야 한다. 활주운동은 새로운 분해 지점을 찾고 한 곳의 영양분을 소진한 뒤 퍼지는 데 유리할 수 있다. 다만 움직이지 못하는 돌연변이가 키틴 이용에도 결함을 보인다는 초기 관찰만으로 이동 속도와 자연환경의 분해량이 일대일로 연결된다고 단정할 수는 없다. 운동과 분비에 같은 단백질이 관여해 두 기능이 함께 손상될 수 있기 때문이다.
이 세균의 효소와 다당류 이용 체계는 식물성 바이오매스나 갑각류 부산물을 당으로 전환하는 연구에 참고가 된다. 그러나 배양 접시에서의 분해 능력이 곧 산업 생산성을 뜻하지는 않는다. 복합 원료 속 억제물질, 효소 회수 비용, 다른 미생물과의 경쟁을 따져야 하며, 병원성 Flavobacterium 종의 성질을 UW101에 섞어서도 안 된다.
F. johnsoniae를 살펴보며 인상 깊었던 것은 움직이는 주체가 세포 전체이기 전에 세포 표면의 단백질이라는 점이었다. 바닥에 붙지 않았을 때는 나선형으로 순환할 뿐인 SprB가 접촉하는 순간 몸을 미는 발판이 되고, 같은 외피 장치는 먹이를 자르는 효소까지 밖으로 보낸다. 이동과 소화가 별개의 기능처럼 보이지만 작은 세포에서는 하나의 표면을 함께 써야 한다. 이 세균의 활주는 보이지 않는 편모를 찾는 문제가 아니라 세포 외피를 움직이는 공간으로 다시 보는 문제라고 느껴졌다.
참고자료
- McBride, M. J. 외, “Novel Features of the Polysaccharide-Digesting Gliding Bacterium Flavobacterium johnsoniae as Revealed by Genome Sequence Analysis”, Applied and Environmental Microbiology, 2009, 75권, 21호, 6864–6875쪽. 원문 보기
- Nakane, D. 외, “Helical flow of surface protein required for bacterial gliding motility”, Proceedings of the National Academy of Sciences, 2013, 110권, 27호, 11145–11150쪽. 원문 보기
- Shrivastava, A., Lele, P. P., Berg, H. C., “A rotary motor drives Flavobacterium gliding”, Current Biology, 2015, 25권, 3호, 338–341쪽. 원문 보기
- Kharade, S. S., McBride, M. J., “Flavobacterium johnsoniae Chitinase ChiA Is Required for Chitin Utilization and Is Secreted by the Type IX Secretion System”, Journal of Bacteriology, 2014, 196권, 5호, 961–970쪽. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, “Flavobacterium johnsoniae subsp. johnsoniae”, DSMZ, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 산소에 약한 질소고정효소를 지키면서 호흡하는 세균 (0) | 2026.09.17 |
|---|---|
| 다른 계통에서 건너온 광합성 유전자는 어떻게 새로운 생활방식이 됐을까? (0) | 2026.09.16 |
| 암모니아에서 질산염까지 혼자 완성하는 세균은 어떻게 발견됐을까? (0) | 2026.09.14 |
| 산소 없이 암모늄을 없애는 쿠에네니아의 아나목스 반응 (0) | 2026.09.13 |
| 세포 안에 탄산염 광물을 만드는 글로에오마르가리타가 남긴 진화의 단서 (1) | 2026.09.12 |