
티스토리 뷰
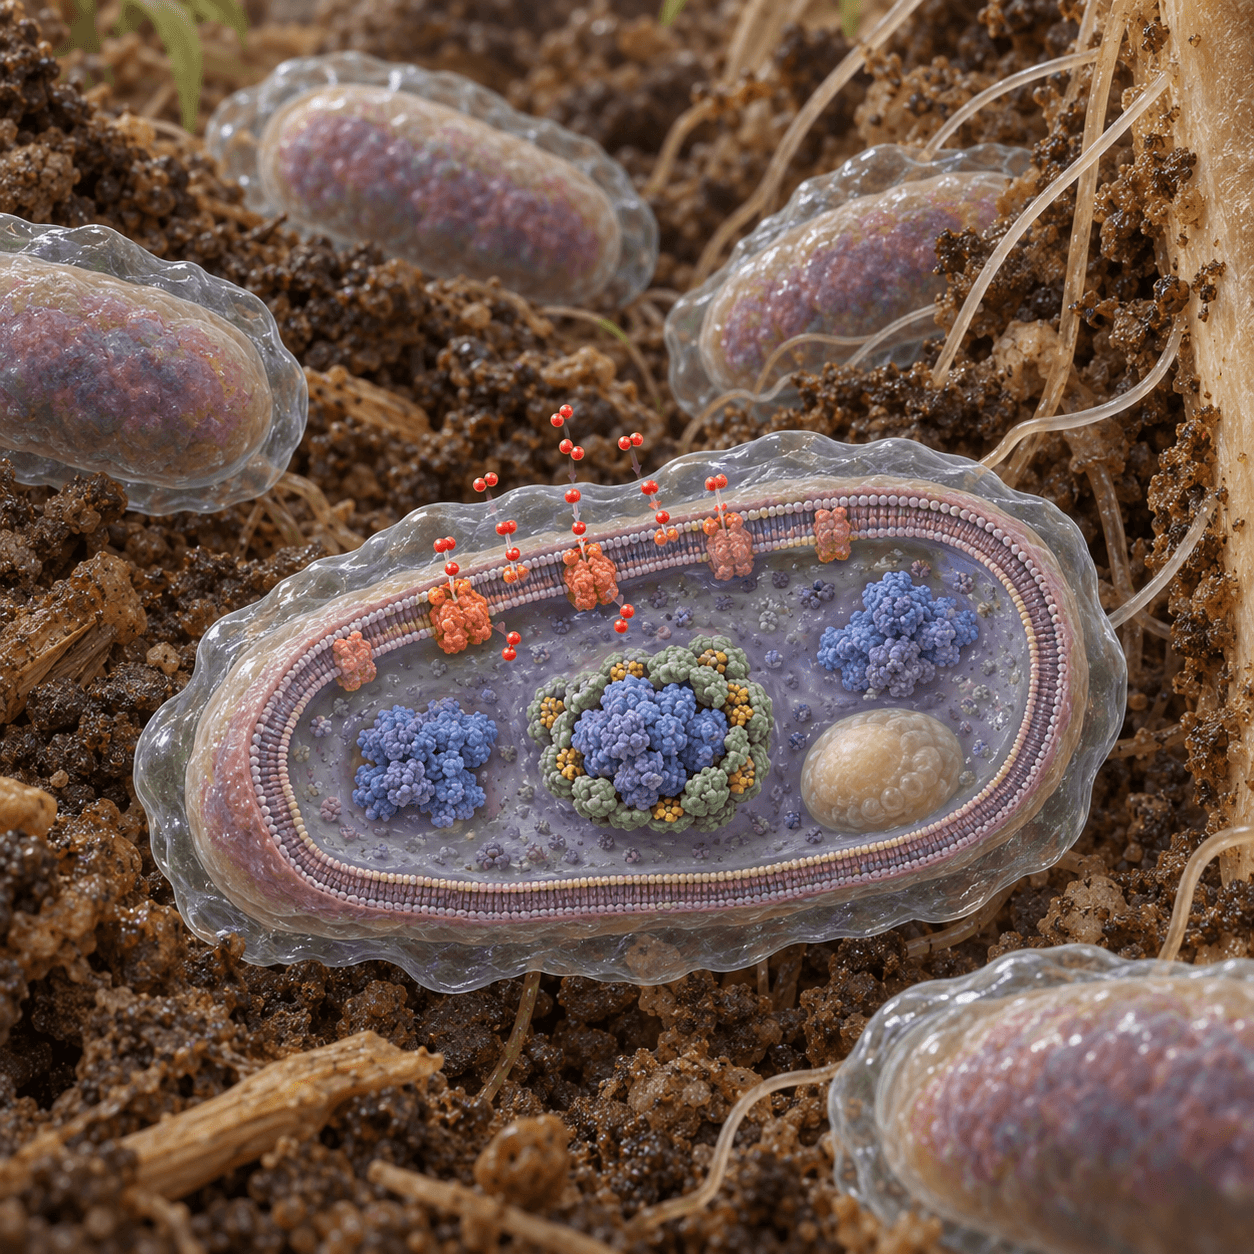
과학사에서 하버-보쉬법을 만든 하버는 너무나 유명하다. '공기로 빵을 만든 과학자'라는 그의 수식어 또한 질소 이용의 가치를 말한다고 볼 수도 있겠다. 공기 중의 질소를 이용한다는 것은 매우 어려운 것인데 질소 고정 세균들에 의해 이 일이 일어난다는 것은 생명체에겐 가치 있는 있는 일이다. 그런데 질소고정효소는 대기의 질소 기체를 암모니아로 바꾸지만 산소에 노출되면 금속·황 중심이 손상된다. 그래서 많은 질소고정 미생물은 산소가 적은 곳에서 살거나, 뿌리혹처럼 산소 농도가 조절되는 공간을 이용한다. Azotobacter vinelandii는 이와 달리 산소호흡을 해야 하는 절대호기성 세균이면서 공기 중에서도 질소를 고정한다. 산소는 ATP를 얻는 데 필요하지만 동시에 그 ATP를 사용할 효소를 망가뜨릴 수 있다는 모순을 여러 겹의 보호 장치로 다룬다.
이 종은 미국 뉴저지주 바인랜드에서 분리돼 1903년 제이컵 립먼이 보고했으며 지명에서 종소명이 유래했다. LPSN에 따르면 A. vinelandii는 국제원핵생물명명규약에 따라 유효 공표된 정명이고 표준 균주는 ATCC 478을 비롯한 여러 기탁번호로 보존된다. 토양에서 자유생활하는 그람음성 세균으로, 연구에는 야생형에서 유래한 OP와 유전학적 조작이 쉬운 DJ 계통이 널리 사용된다. 서로 다른 균주의 실험 결과를 표준 균주의 고정된 특성처럼 섞지 않는 것이 중요하다.
질소 결합을 끊는 데 호흡 에너지를 집중한다
대기 중 질소 분자는 두 질소 원자가 삼중결합으로 묶여 있어 반응성이 매우 낮다. 몰리브데넘 질소고정효소는 질소 한 분자를 두 분자의 암모니아로 환원하는 동안 적어도 16분자의 ATP와 여러 전자를 사용하고 수소도 함께 만든다. 세균은 당과 유기산 같은 탄소원을 산화해 전자와 ATP를 마련하고, 만들어진 암모니아를 아미노산과 핵산 합성에 사용한다. 배지에 이용 가능한 암모늄이 있으면 비용이 큰 질소고정효소 합성을 억제한다.
DJ 균주의 2009년 완전 유전체는 5,365,318염기쌍의 원형 염색체 하나로 보고됐다. 여기에는 몰리브데넘을 쓰는 질소고정효소뿐 아니라 바나듐 의존성 및 철만 사용하는 대체 질소고정효소 유전자군도 있다. 몰리브데넘이 충분할 때는 효율이 높은 Mo 질소고정효소가 주로 작동하고, 이용 가능한 금속이 달라지면 대체 효소의 발현이 조절된다. 세 종류를 동시에 같은 비율로 가동하는 것이 아니라 환경의 금속 조건에 맞춰 선택하는 체계다.
호흡은 보호와 에너지 생산을 함께 맡는다. 세포막의 전자전달계가 산소를 빠르게 물로 환원하면 세포질까지 도달하는 산소를 낮추는 데 도움이 된다. 특히 산소 친화도가 높은 시토크롬 bd 말단산화효소는 질소고정 조건의 산소 소비에 중요하다. 다만 높은 호흡률 하나가 모든 조건에서 주된 보호 기작이라는 설명에는 논쟁이 있었다. 산소 농도와 탄소 공급, 인산 제한, 세포의 피막 상태에 따라 호흡 효율과 다른 보호 장치의 상대적 기여가 달라진다.
알지네이트 피막은 산소가 들어오는 속도를 늦춘다
A. vinelandii는 만누론산과 굴루론산으로 이뤄진 다당류 알지네이트를 세포 밖에 만든다. 2000년 인산이 제한된 질소고정 배양에서는 산소가 높을수록 세포 표면의 알지네이트 피막이 더 치밀하고 굴루론산 비율이 높은 구조로 바뀌었다. 연구진은 이 피막이 산소 전달 저항을 높여 질소고정효소를 보호한다고 해석했다. 같은 실험 조건에서는 호흡률 증가보다 피막의 양과 조성이 산소 스트레스에 대응하는 데 더 잘 맞았다.
이 결과를 알지네이트가 언제나 질소고정효소 보호의 중심이라고 일반화할 수는 없다. 해당 연구는 피막을 만드는 특정 균주를 인산 제한 연속배양한 결과다. 피막이 적은 계통이나 탄소와 인산, 교반 조건이 다른 환경에서는 빠른 호흡과 세포 표면적 조절의 비중이 달라질 수 있다. 알지네이트는 산소뿐 아니라 물질 이동 전반을 늦출 수 있으므로 두꺼운 피막이 항상 성장에 유리한 것도 아니다.
탄소원이 고갈되면 일부 세포는 영양세포와 다른 휴면형인 낭포로 분화한다. 낭포는 알지네이트가 포함된 여러 층의 피막과 저장물질을 갖춰 건조와 물리적 스트레스에 견디다가 환경이 좋아지면 발아한다. 이는 활발히 질소를 고정하는 세포에서 효소를 순간적으로 지키는 과정과는 다른 시간 규모의 전략이다. 알지네이트가 두 과정에 모두 관여해도, 낭포 형성을 곧 질소고정효소 보호 자체로 설명해서는 안 된다.
산소가 갑자기 늘면 FeSII가 효소를 잠시 멈춘다
환경의 산소가 갑자기 높아지면 호흡과 피막만으로 대응하기 전에 질소고정효소가 손상될 수 있다. 이때 FeSII 또는 셰트나 단백질 II라 불리는 작은 철·황 단백질이 Mo 질소고정효소의 두 구성요소와 결합해 촉매 작용을 일시적으로 멈춘 보호 복합체를 만든다. 산소 스트레스가 줄고 환원 상태가 회복되면 복합체가 풀려 효소가 다시 작동할 수 있다. 계속 반응하다 비가역적으로 손상되는 대신 잠시 잠그는 ‘구조적 보호’다.
2025년 극저온 전자현미경 연구에서는 산화된 FeSII 이합체가 MoFe 단백질과 Fe 단백질을 각각 두 개씩 묶어 약 620킬로달톤의 핵심 복합체를 만들고, 이 복합체가 더 긴 필라멘트로 이어지는 구조가 확인됐다. 복합체 안의 질소고정효소는 비활성이지만 산소를 제거하고 환원하면 구성요소가 빠르게 방출됐다. 특히 산소에 더 민감한 Fe 단백질이 먼저 FeSII와 결합하는 순서도 제시됐다.
FeSII가 없어도 실험 조건에 따라 호기성 질소고정이 완전히 사라지지는 않는다. 1994년 결실 돌연변이 연구에서는 FeSII가 필수 단백질은 아니지만 산소에 의한 비활성화로부터 의미 있는 보호를 제공했다. 이는 한 장치가 모든 상황을 해결하기보다 빠른 산소 소비, 세포 밖 확산 장벽, 효소의 가역적 잠금이 서로 다른 속도의 산소 변화에 대응한다는 해석과 맞는다.
비료를 대신하는 세균이 되려면 질소 전달까지 해결해야 한다
이 세균은 뿌리혹 공생 없이 질소를 고정하므로 미생물 비료 후보로 자주 언급된다. 그러나 야생형은 만든 암모니아의 대부분을 자신의 성장에 사용하고, 토양에 넣은 균이 작물에 충분한 질소를 안정적으로 넘겨준다고 보장할 수 없다. 토착 미생물과의 경쟁, 수분과 탄소원, 토양 pH가 정착을 좌우한다. 질소 조절 유전자를 바꿔 암모니아를 방출시키는 균주도 연구되지만 생산 부담 때문에 성장력이 낮아질 수 있고 환경 방출에는 안전성 평가가 필요하다.
따라서 실험실에서 측정한 질소고정 속도나 암모니아 방출량을 밭의 비료 절감률로 곧바로 바꾸어 말할 수 없다. 접종한 균이 뿌리 주변에 얼마나 오래 남는지, 작물이 실제로 흡수한 질소가 얼마인지, 기존 비료와 함께 쓸 때 질소 유실이 줄어드는지를 작물과 토양 조건별로 확인해야 한다.
산소 아래에서 작동하는 질소고정 시스템은 작물 세포나 산업 미생물에 질소고정효소를 옮기려는 연구에도 좋은 모델이다. 다만 효소 유전자만 넣어서는 충분하지 않다. 금속·황 보조인자의 조립, ATP와 전자 공급, 산소 제거, FeSII 같은 보호 장치가 함께 맞아야 한다. 알지네이트는 식품과 의약 소재로 쓰이는 다당류이고 이 종은 조성을 조절할 수 있어 생산 연구에 이용되지만, 질소고정과 고분자 생산 사이의 탄소·에너지 배분도 공정에서 관리해야 한다.
A. vinelandii를 살펴보며 인상 깊었던 것은 산소를 완전히 차단하지 않고도 산소에 약한 효소를 운용한다는 점이었다. 평소에는 호흡으로 산소를 줄이고 피막으로 유입 속도를 늦추며, 갑작스러운 변화에는 효소를 잠가 버린다. 어느 하나도 완벽한 방패는 아니지만 서로 다른 시간대에 작동하는 장치가 겹치면 모순적인 생활이 가능해진다. 질소고정 작물을 만들겠다는 목표도 효소 하나를 옮기는 문제가 아니라 이런 보호의 층을 새 숙주에 다시 설계하는 일이라는 생각이 들었다.
참고자료
- Setubal, J. C. 외, “Genome Sequence of Azotobacter vinelandii, an Obligate Aerobe Specialized To Support Diverse Anaerobic Metabolic Processes”, Journal of Bacteriology, 2009, 191권, 14호, 4534–4545쪽. 원문 보기
- Sabra, W.·Zeng, A.-P.·Lünsdorf, H.·Deckwer, W.-D., “Effect of Oxygen on Formation and Structure of Azotobacter vinelandii Alginate and Its Role in Protecting Nitrogenase”, Applied and Environmental Microbiology, 2000, 66권, 9호, 4037–4044쪽. 원문 보기
- Franke, P.·Freiberger, S.·Zhang, L.·Einsle, O., “Conformational protection of molybdenum nitrogenase by Shethna protein II”, Nature, 2025, 637권, 8047호, 998–1004쪽. 원문 보기
- Moshiri, F. 외, “The FeSII protein of Azotobacter vinelandii is not essential for aerobic nitrogen fixation, but confers significant protection to oxygen-mediated inactivation of nitrogenase in vitro and in vivo”, Molecular Microbiology, 1994, 14권, 1호, 101–114쪽. 원문 정보 보기
- List of Prokaryotic names with Standing in Nomenclature, “Azotobacter vinelandii”, DSMZ, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 거대한 유전체와 실 모양 성장을 지닌 토양 세균 (1) | 2026.09.19 |
|---|---|
| 메마른 암석과 긴 파장의 빛을 견디는 시아노박테리아의 생존법 (0) | 2026.09.18 |
| 다른 계통에서 건너온 광합성 유전자는 어떻게 새로운 생활방식이 됐을까? (0) | 2026.09.16 |
| 편모 없이 표면을 미끄러지는 플라보박테리움은 무엇으로 움직일까? (0) | 2026.09.15 |
| 암모니아에서 질산염까지 혼자 완성하는 세균은 어떻게 발견됐을까? (0) | 2026.09.14 |