
티스토리 뷰
생명과학을 가르칠 때 재미있게 느꼈던 부분 중 하나는 세포내공생설 이었다. 즉 광합성이 가능한 세균과 공생하며 식물과 같은 생명체가 광합성이 가능해졌다는 말이다. 사실 빛을 이용하는 능력은 한 생물 계통이 오랜 시간 조금씩 만들어 온 고유한 특징처럼 보인다. 그러나 Gemmatimonas phototrophica는 광합성 장치에 필요한 유전자 묶음을 먼 계통의 세균에게서 수평적으로 전달받은 것으로 분석된다. 수평적 유전자 이동은 부모에서 자손으로 내려가는 유전과 달리, 서로 다른 생물 계통 사이에서 DNA가 옮겨지는 현상이다. 중요한 것은 유전자를 받은 사실만이 아니다. 새 숙주의 막과 대사, 유전자 조절 체계 안에서 그 유전자들이 실제로 작동하는 광합성 장치가 됐다는 점이다.
표준 균주 AP64는 2011년 중국 북부 고비사막 서쪽의 담수호인 스완호에서 분리됐다. 2014년 유전체와 색소, 광화학 반응을 분석한 연구에서 Gemmatimonadetes 계통에서는 처음으로 기능성 광합성 반응중심이 확인됐고, 2015년 G. phototrophica라는 신종으로 유효 공표됐다. 현재 LPSN은 이 종을 Gemmatimonadota문에 속하는 정명으로 수록하며 표준 균주는 AP64, DSM 29774, MCCC 1K00455다. 최초 종 기재 논문의 MCCC 번호 1K00454는 뒤에 1K00455로 정정됐다.
산소가 조금 적은 호숫가에서 붉은 막대형 세포가 자란다
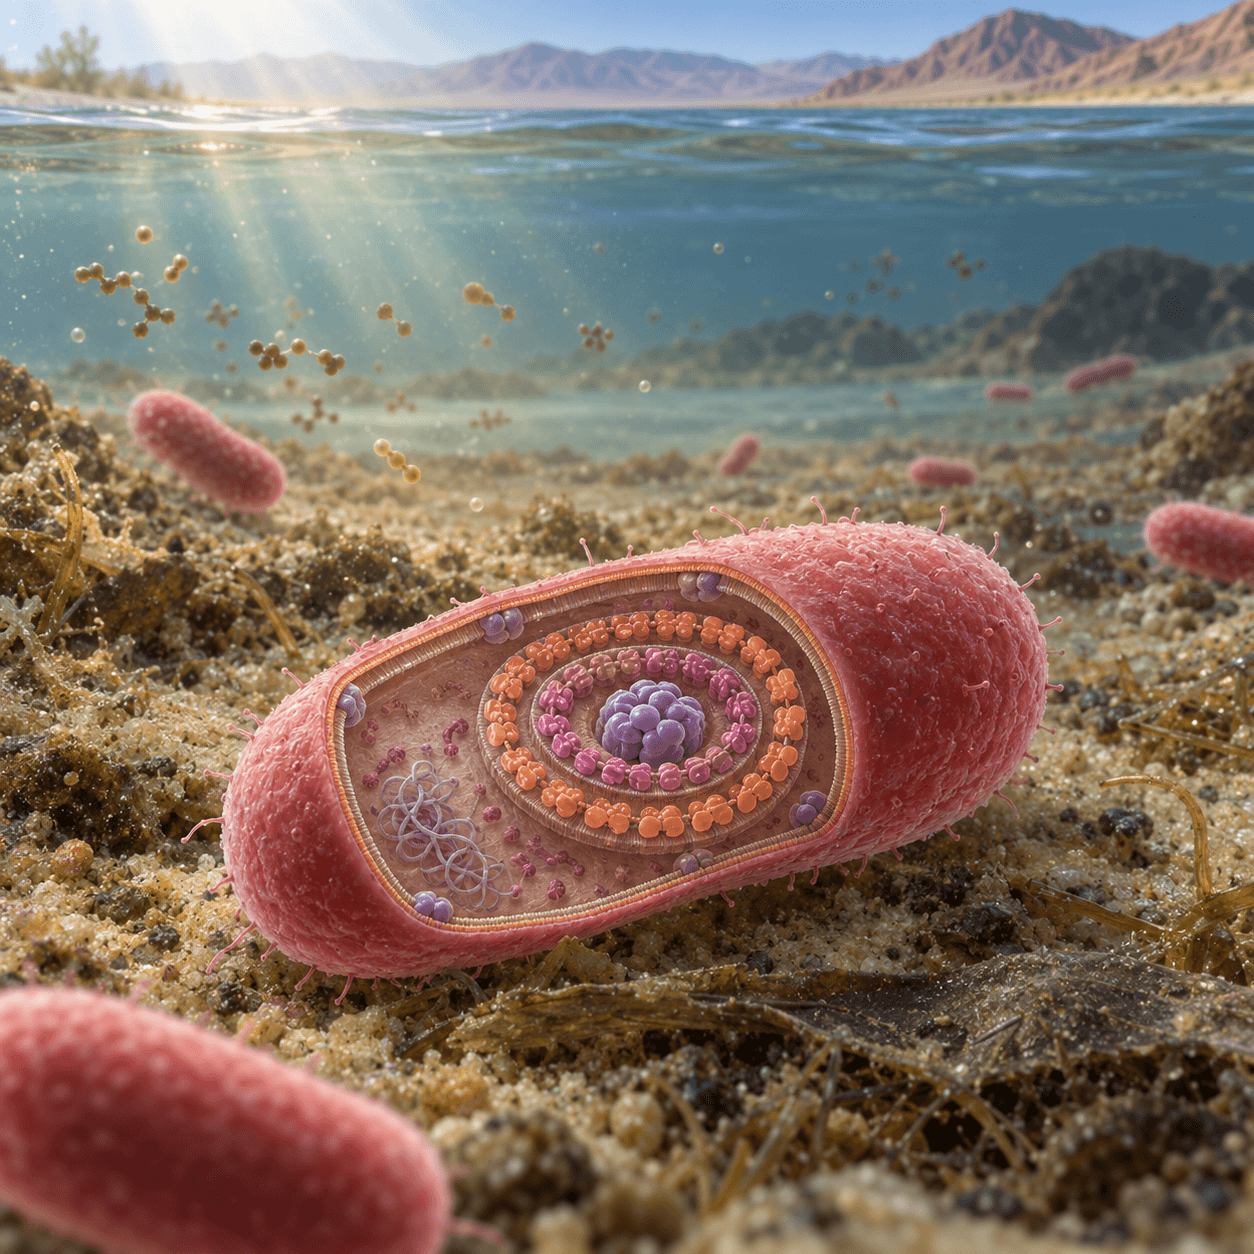
AP64 세포는 막대 모양이며 대칭 또는 비대칭 이분법으로 나뉘고, 일부에서는 출아처럼 보이는 구조도 관찰됐다. 붉은빛을 띠는 것은 박테리오클로로필 a와 여러 카로티노이드 색소를 지니기 때문이다. 종 기재 실험에서 한천배지의 성장은 대기 산소 농도의 약 9.8~15.2% 범위에서 가장 좋았다. 따라서 산소가 전혀 없는 광합성세균도, 공기 중 산소가 충분할수록 잘 자라는 전형적인 호기성 세균도 아닌 미호기성 생활에 가깝다.
이 세균은 빛과 이산화탄소만으로 몸을 만들지 못한다. 유전체에는 주요 이산화탄소 고정 경로가 없고, 성장하려면 유기탄소가 필요하다. 빛을 받으면 박테리오클로로필이 흡수한 에너지가 막의 반응중심에서 전자의 순환 흐름을 만들고 ATP 생산을 보탠다. 물을 분해해 산소를 내놓는 시아노박테리아의 광합성과 달리 산소를 발생시키지 않으며, 어둠에서도 유기물을 이용해 성장하고 색소를 만들 수 있다. 그래서 생활방식은 빛을 선택적으로 보조 에너지원으로 쓰는 통성 광종속영양으로 분류된다.
42.3킬로베이스의 유전자 묶음이 이동의 흔적을 남겼다
AP64 유전체에는 반응중심 단백질, 박테리오클로로필과 카로티노이드 합성, 광합성 장치 조립에 관련된 유전자들이 약 42.3킬로베이스 길이의 광합성 유전자 클러스터에 모여 있다. 각 유전자의 계통 관계와 배열을 비교하면 이 묶음은 같은 Gemmatimonadota의 비광합성 친척보다 광합성 Pseudomonadota의 유전자군과 가깝다. 이를 바탕으로 연구진은 고대의 보라색 광합성세균 계통에서 조상 Gemmatimonadota로 유전자 묶음이 이동했다고 해석했다.
이 결과가 오늘날 특정 보라색 세균 한 종이 AP64에 직접 유전자를 건넸다는 뜻은 아니다. 이동은 현생 종들이 갈라지기 전에 일어난 것으로 추정되며 정확한 제공자와 시점은 계통분석만으로 확정할 수 없다. 광합성 유전자가 한꺼번에 모여 있다는 사실도 중요하다. 서로 떨어진 유전자 하나씩을 받는 것보다 반응중심과 색소 합성, 조립에 필요한 기능이 연결된 묶음으로 이동해야 새 숙주에서 완전한 장치가 만들어질 가능성이 커진다.
비광합성인 가까운 친척 Gemmatimonas aurantiaca와 비교하면, 광합성은 이 속 전체가 처음부터 공유한 필수 형질이 아니다. 반대로 환경 DNA에서 광합성 유전자를 지닌 Gemmatimonadota 계통이 검출된다고 해서 모두 AP64와 같은 산소 요구량과 이중 고리 구조를 지닌다고 볼 수도 없다. AP64는 유전자 이동이 실제 기능으로 이어진 한 배양 종을 보여주는 사례다.
수평 이동 뒤에는 새 숙주의 생리와 맞지 않는 유전자가 사라지거나 조절 방식이 바뀔 수 있다. 2024년 전사체 연구에서는 AP64의 광합성 유전자 발현이 빛의 세기와 산소 농도 변화에 예상보다 작게 반응했다. 많은 보라색 광합성세균이 산소와 빛에 따라 광합성 장치를 강하게 조절하는 것과 달리, AP64는 호기성과 미호기성 조건에서 전반적인 발현 차이가 크지 않았다. 이는 전달받은 유전자들이 원래 제공자의 조절 체계를 그대로 보존하지 않고 새 숙주 안에서 비교적 단순한 제어 상태로 통합됐을 가능성을 보여준다.
두 겹의 안테나 고리가 희미한 빛을 반응중심으로 모은다
2022년 극저온 전자현미경으로 규명한 AP64 광합성 복합체는 중앙의 제2형 반응중심을 두 겹의 색소·단백질 고리가 둘러싼 구조였다. 안쪽에는 16개의 소단위체로 된 LH1 고리가 있고, 그 바깥에는 24개의 소단위체로 된 안테나 고리가 자리한다. 바깥 고리가 흡수한 빛 에너지는 안쪽 고리를 거쳐 중앙 반응중심으로 전달된다. 대부분의 보라색세균에서 여러 LH2 복합체가 반응중심 주변에 흩어지는 배열과 달리, 하나의 동심원형 이중 고리가 만들어지는 점이 AP64 장치의 특징이다.
반응중심에서 들뜬 전자는 퀴논으로 전달된 뒤 막의 전자전달계를 순환하며 양성자 농도 차이를 만든다. ATP 합성효소는 이 차이를 이용해 ATP를 생산한다. 전자가 물에서 출발해 최종적으로 탄소고정에 쓰이는 산소발생 광합성과 달리, 이 순환 전자 흐름은 유기물을 분해하는 데 필요한 에너지 부담을 줄여 주는 쪽에 가깝다. AP64가 빛 없이도 자랄 수 있다는 사실과 함께 보면 광합성은 생존의 유일한 통로가 아니라 유기탄소가 제한될 때 효율을 높이는 추가 장치로 이해할 수 있다.
유전자를 얻는 것과 생태적 이점을 얻는 것은 같은 일이 아니다
광합성 유전자 클러스터가 다른 세균으로 옮겨졌다고 해서 곧바로 빛을 이용하는 새 생물이 완성되지는 않는다. 색소는 빛을 흡수하는 동시에 활성산소를 만들 수 있고, 여러 단백질을 정확한 비율로 막에 조립해야 하며, 유기물 대사와 에너지 생산의 균형도 맞아야 한다. AP64의 사례는 이동한 유전자 묶음이 장기간 선택을 거치며 숙주의 세포막과 대사에 통합된 결과를 보여주는 것이지, 광합성을 간단히 이식할 수 있다는 증거는 아니다.
이중 고리 안테나는 자연의 약한 빛을 모으는 원리를 이해하고 인공 광수확 장치를 설계하는 비교 모델이 될 수 있다. 그러나 정제한 복합체의 에너지 전달 효율과 살아 있는 세균을 산업 공정에 쓰는 문제는 구분해야 한다. AP64는 미호기성이고 유기탄소를 요구하며 액체배양 조건도 세밀하게 맞춰야 한다. 실제 활용에는 복합체의 안정성, 생산량, 전극이나 인공막과의 결합을 별도로 검증해야 한다.
G. phototrophica를 살펴보며 가장 오래 남은 부분은 유전자를 ‘가졌다’는 말과 그 유전자로 살아간다는 말 사이의 거리였다. 42.3킬로베이스의 DNA가 옮겨온 사건은 출발점일 뿐이고, 색소를 합성하고 두 겹의 안테나를 조립하며 산소가 있는 환경에서 손상 없이 운용하는 과정이 뒤따라야 빛이 실제 에너지가 된다. 진화의 새 능력은 완성품을 한 번에 받아 얻는 것이 아니라, 낯선 부품을 기존 생활 속에 오래 맞춰 가는 과정이라는 점을 이 세균이 구체적으로 보여준다고 느꼈다.
참고자료
- Zeng, Y. 외, “Functional type 2 photosynthetic reaction centers found in the rare bacterial phylum Gemmatimonadetes”, Proceedings of the National Academy of Sciences, 2014, 111권, 21호, 7795–7800쪽. 원문 보기
- Zeng, Y. 외, “Characterization of the microaerophilic, bacteriochlorophyll a-containing bacterium Gemmatimonas phototrophica sp. nov., and emended descriptions of the genus Gemmatimonas and Gemmatimonas aurantiaca”, International Journal of Systematic and Evolutionary Microbiology, 2015, 65권, 8호, 2410–2419쪽. 원문 정보 보기
- Qian, P. 외, “2.4-Å structure of the double-ring Gemmatimonas phototrophica photosystem”, Science Advances, 2022, 8권, 7호, eabk3139. 원문 보기
- Kopejtka, K. 외, “Minimal transcriptional regulation of horizontally transferred photosynthesis genes in phototrophic bacterium Gemmatimonas phototrophica”, mSystems, 2024, 9권, 9호, e00706-24. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, “Gemmatimonas phototrophica”, DSMZ, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 메마른 암석과 긴 파장의 빛을 견디는 시아노박테리아의 생존법 (0) | 2026.09.18 |
|---|---|
| 산소에 약한 질소고정효소를 지키면서 호흡하는 세균 (0) | 2026.09.17 |
| 편모 없이 표면을 미끄러지는 플라보박테리움은 무엇으로 움직일까? (0) | 2026.09.15 |
| 암모니아에서 질산염까지 혼자 완성하는 세균은 어떻게 발견됐을까? (0) | 2026.09.14 |
| 산소 없이 암모늄을 없애는 쿠에네니아의 아나목스 반응 (0) | 2026.09.13 |