
티스토리 뷰
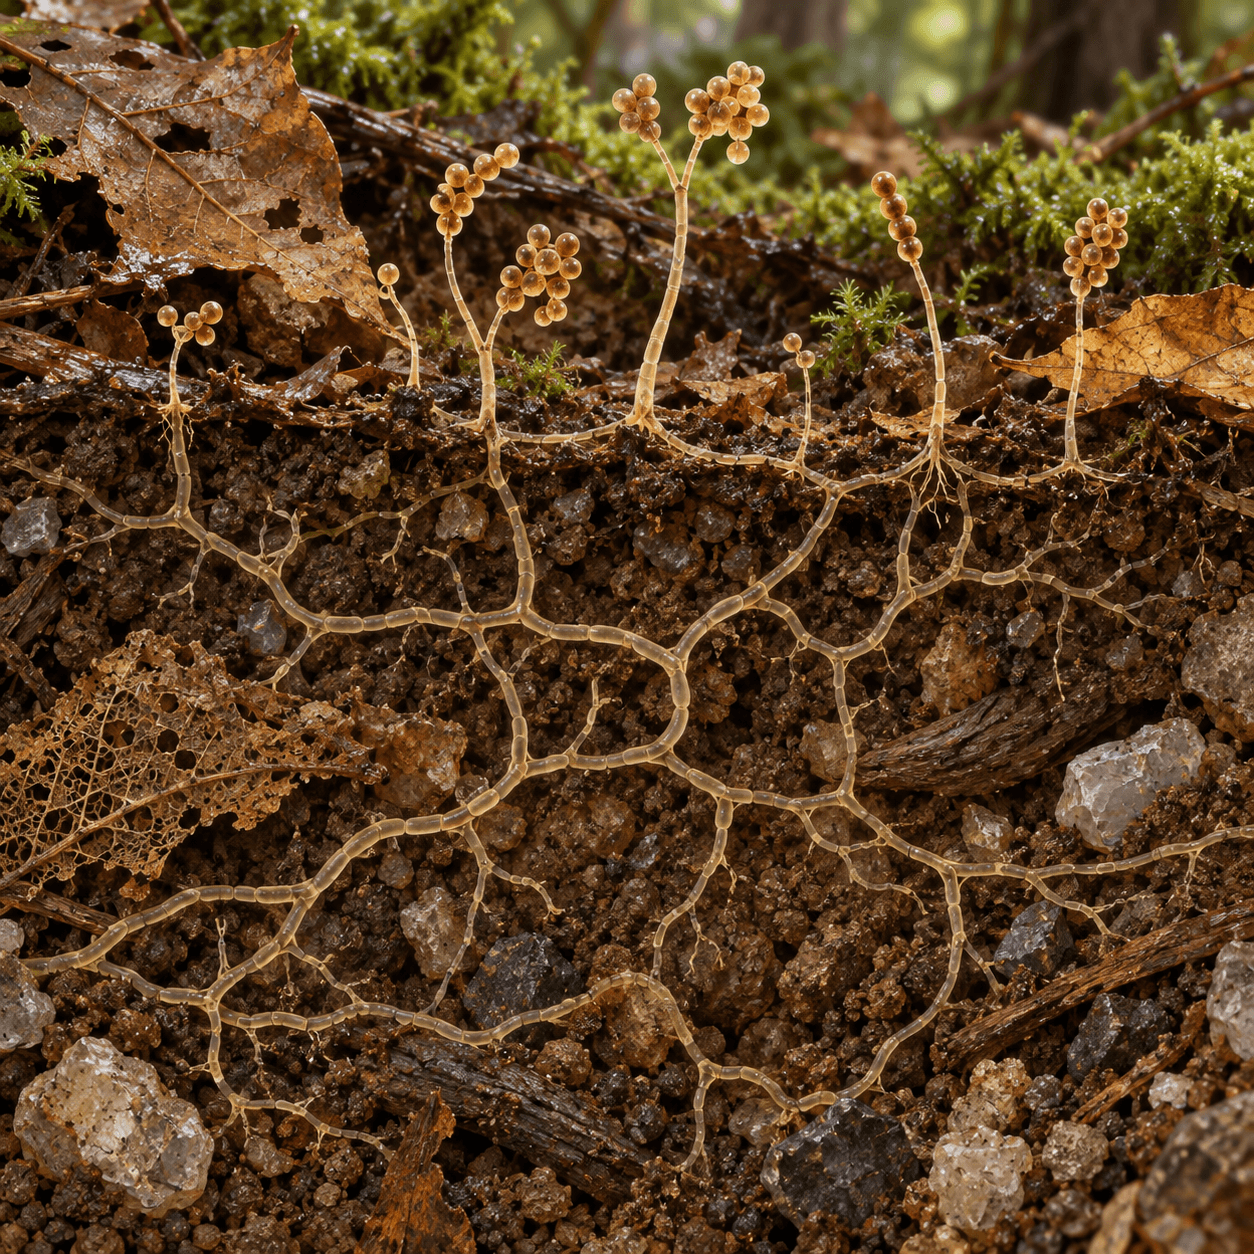
Ktedonobacter racemifer는 세균이지만 배양 접시에서는 곰팡이나 방선균과 비슷한 모습을 보인다. 가느다란 실이 가지를 치며 기질 속으로 퍼지고, 일부 균사는 공기 중으로 올라온 뒤 둥근 포자를 만든다. 그러나 리보솜 RNA와 유전체를 비교하면 전형적인 방선균 계통이 아니라 Chloroflexota문 안의 독립적인 계통에 속한다. 닮은 형태가 반드시 가까운 진화적 관계를 뜻하지 않는 사례다.
표준 균주 SOSP1-21은 이탈리아의 숲 토양에서 분리됐고 2006년 새로운 계통의 사상성 포자형성 세균으로 보고됐다. 처음에는 Ktedobacter racemifer라는 철자가 사용됐으나 2007년 명칭이 검증되는 과정에서 Ktedonobacter racemifer로 교정됐다. LPSN은 교정된 이름을 유효 공표된 정명으로 수록하며 표준 균주는 SOSP1-21, DSM 44963, NRRL B-41538이다.
기질균사와 기중균사가 서로 다른 공간을 이용한다
SOSP1-21은 여러 세포가 이어진 가는 균사를 만들고 균사 중간에는 격벽이 나타난다. 토양과 배지 안쪽으로 뻗는 기질균사는 유기물과 물을 접하는 면적을 넓힌다. 배양이 진행되면 일부 균사가 표면 위로 올라와 기중균사가 되고, 그 끝이나 가지에 포도송이처럼 모인 구형 또는 타원형 외생포자가 형성된다. 종소명 racemifer도 송이 모양 구조를 지닌다는 뜻에서 붙었다.
포자는 세포 내부에 하나씩 생기는 내생포자와 형성 방식이 다르다. 균사의 끝부분이 구획되고 성숙하면서 외부에 연결된 여러 포자가 만들어진다. 포자는 영양세포보다 건조와 영양 부족을 견디고 새로운 토양 입자로 퍼지는 데 유리할 수 있다. 그렇다고 고온 멸균까지 견디는 세균 내생포자와 같은 내성을 가진다고 단정할 수는 없다.
세포 외피는 그람양성형으로 기술됐지만 전형적인 방선균의 세포벽 성분과 완전히 같지는 않다. 성장도 빠르지 않아 눈에 보이는 집락과 포자 형성까지 여러 날이 걸린다. SOSP1-21은 산소가 있는 조건에서 유기물을 이용하는 종속영양세균이며 약 17도에서 40도 사이에서 성장하고 28도에서 33도 부근에서 비교적 잘 자란다. 약산성 토양 조건을 선호하지만 자연에서의 범위는 배양실 수치보다 넓거나 좁을 수 있다.
약 1,366만 염기쌍의 유전체는 왜 이렇게 클까?
2011년 공개된 SOSP1-21의 유전체 조립본은 10개 조각을 합해 13,661,586염기쌍에 이르렀고 11,453개의 단백질 암호화 유전자가 예측됐다. 당시 완성도가 높은 세균 유전체 가운데 매우 큰 편에 속했다. 그러나 가장 큰 세균 유전체라는 표현은 이후 더 큰 유전체가 보고될 수 있고 조립 방식에 따라서도 비교가 달라지므로 현재의 고정된 기록으로 사용할 수 없다.
유전체가 크다는 사실은 세포 하나가 더 고등하거나 복잡하다는 의미가 아니다. 토양에서는 식물 잔해와 미생물 세포벽, 여러 종류의 당이 불균일하게 분포한다. 많은 수송체와 조절 단백질, 탄수화물 분해효소 후보는 자원이 달라질 때 서로 다른 대사 조합을 꺼낼 가능성을 넓혀 준다. 실 모양으로 넓은 공간을 탐색하는 성장 방식과 다양한 환경 신호에 대응하는 유전자 수가 함께 선택됐을 가능성이 있다.
유전체에는 반복 서열과 이동성 유전요소도 비교적 많다. 이런 구역은 유전자 중복과 재배열을 일으켜 새로운 기능이 생길 재료가 될 수 있지만, 모든 반복 서열이 환경 적응에 이롭다고 볼 수는 없다. 일부는 현재 기능이 없거나 과거 이동 사건의 흔적일 수 있다. 유전자 수와 실제 배양 조건에서 발현되는 단백질 수도 구분해야 한다.
수많은 생합성 유전자군은 아직 만들어지지 않은 화합물을 가리킨다
SOSP1-21 유전체에서는 비리보솜 펩타이드 합성효소와 폴리케타이드 합성효소를 포함한 여러 이차대사산물 생합성 유전자군이 예측됐다. 이 효소들은 짧은 아미노산이나 탄소 단위를 차례로 연결하고 변형해 구조가 복잡한 물질을 만들 수 있다. 토양 세균에서는 이런 물질이 경쟁 미생물을 억제하거나 금속을 붙잡고 세포 사이 신호를 전달하는 데 쓰일 수 있다.
하지만 생합성 유전자군의 존재가 곧 새로운 항생제의 발견을 의미하지는 않는다. 실험실 배지에서는 상당수 유전자군이 거의 발현되지 않으며, 만들어지는 물질의 구조와 생태적 기능도 서열만으로 확정하기 어렵다. 영양 제한과 다른 미생물의 신호, 토양 입자와의 접촉처럼 자연에 가까운 조건을 재현한 뒤 대사산물을 분리하고 생물활성을 확인해야 한다.
2019년 여러 Ktedonobacteria 유전체를 비교한 연구에서도 이 계통에 다양한 생합성 유전자군이 분포하는 것으로 나타났다. 다만 다른 종에서 발견한 유전자군과 화합물을 SOSP1-21이 실제로 만든다고 표현해서는 안 된다. K. racemifer의 거대한 유전체는 탐색할 후보 목록을 제공하지만 각 후보의 산물은 별도의 배양과 화학 분석을 거쳐야 한다.
느린 토양 세균을 신약 탐색에 이용하려면 생활사를 먼저 알아야 한다
신규 천연물 탐색에서는 빨리 자라는 세균만 반복해 분리하면 알려진 화합물이 다시 발견되기 쉽다. 계통적으로 멀고 배양이 느린 K. racemifer는 기존 방선균과 다른 효소 조합을 제공할 가능성이 있다. 유전체에서 후보 유전자군을 고른 뒤 조절 유전자를 활성화하거나 전체 유전자군을 배양하기 쉬운 숙주에 옮겨 화합물을 생산하는 접근도 생각할 수 있다.
실용화까지는 큰 유전자군을 정확히 조립하는 문제와 낮은 생산량, 배양 조건에 따른 불안정한 발현을 해결해야 한다. 항균 활성이 나타나도 독성과 작용 표적, 내성 발생 가능성을 확인해야 하며 산업 생산에서는 발효 속도와 정제 비용도 중요하다. 유전체의 크기만으로 유용한 물질의 수나 성공 가능성을 계산할 수는 없다.
이 세균을 살펴보며 특히 흥미로웠던 것은 곰팡이 같은 형태와 거대한 유전체가 모두 토양이라는 공간을 향하고 있다는 점이었다. 실 모양 세포는 흩어진 자원을 찾아 물리적으로 뻗고, 많은 유전자는 만날 수 있는 다양한 물질과 이웃에 대응할 선택지를 넓힌다. 다만 내게는 1,366만 염기쌍이라는 기록보다 그중 실제로 언제 작동하는지 모르는 유전자가 많다는 사실이 더 중요하게 느껴진다. 큰 유전체는 완성된 보물상자가 아니라 생활 조건을 알아야 열리는 수많은 잠금장치에 가깝다.
참고자료
- Cavaletti, L. 외, “New lineage of filamentous, spore-forming, gram-positive bacteria from soil”, Applied and Environmental Microbiology, 2006, 72권, 6호, 4360–4369쪽. 원문 보기
- Chang, Y. J. 외, “Non-contiguous finished genome sequence and contextual data of the filamentous soil bacterium Ktedonobacter racemifer type strain SOSP1-21”, Standards in Genomic Sciences, 2011, 5권, 1호, 97–111쪽. 원문 보기
- Yabe, S. 외, “Diversity of Ktedonobacteria with Actinomycetes-Like Morphology in Terrestrial Environments”, Microbes and Environments, 2017, 32권, 1호, 61–70쪽. 원문 보기
- Zheng, Y. 외, “Genome Features and Secondary Metabolites Biosynthetic Potential of the Class Ktedonobacteria”, Frontiers in Microbiology, 2019, 10권, 893. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, “Ktedonobacter racemifer”, DSMZ, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 염소계 오염물질을 호흡에 이용하는 세균 (0) | 2026.09.21 |
|---|---|
| 산성 광산에서 유기물을 먹으며 금속을 견디는 세균 (0) | 2026.09.20 |
| 메마른 암석과 긴 파장의 빛을 견디는 시아노박테리아의 생존법 (0) | 2026.09.18 |
| 산소에 약한 질소고정효소를 지키면서 호흡하는 세균 (0) | 2026.09.17 |
| 다른 계통에서 건너온 광합성 유전자는 어떻게 새로운 생활방식이 됐을까? (0) | 2026.09.16 |