
티스토리 뷰
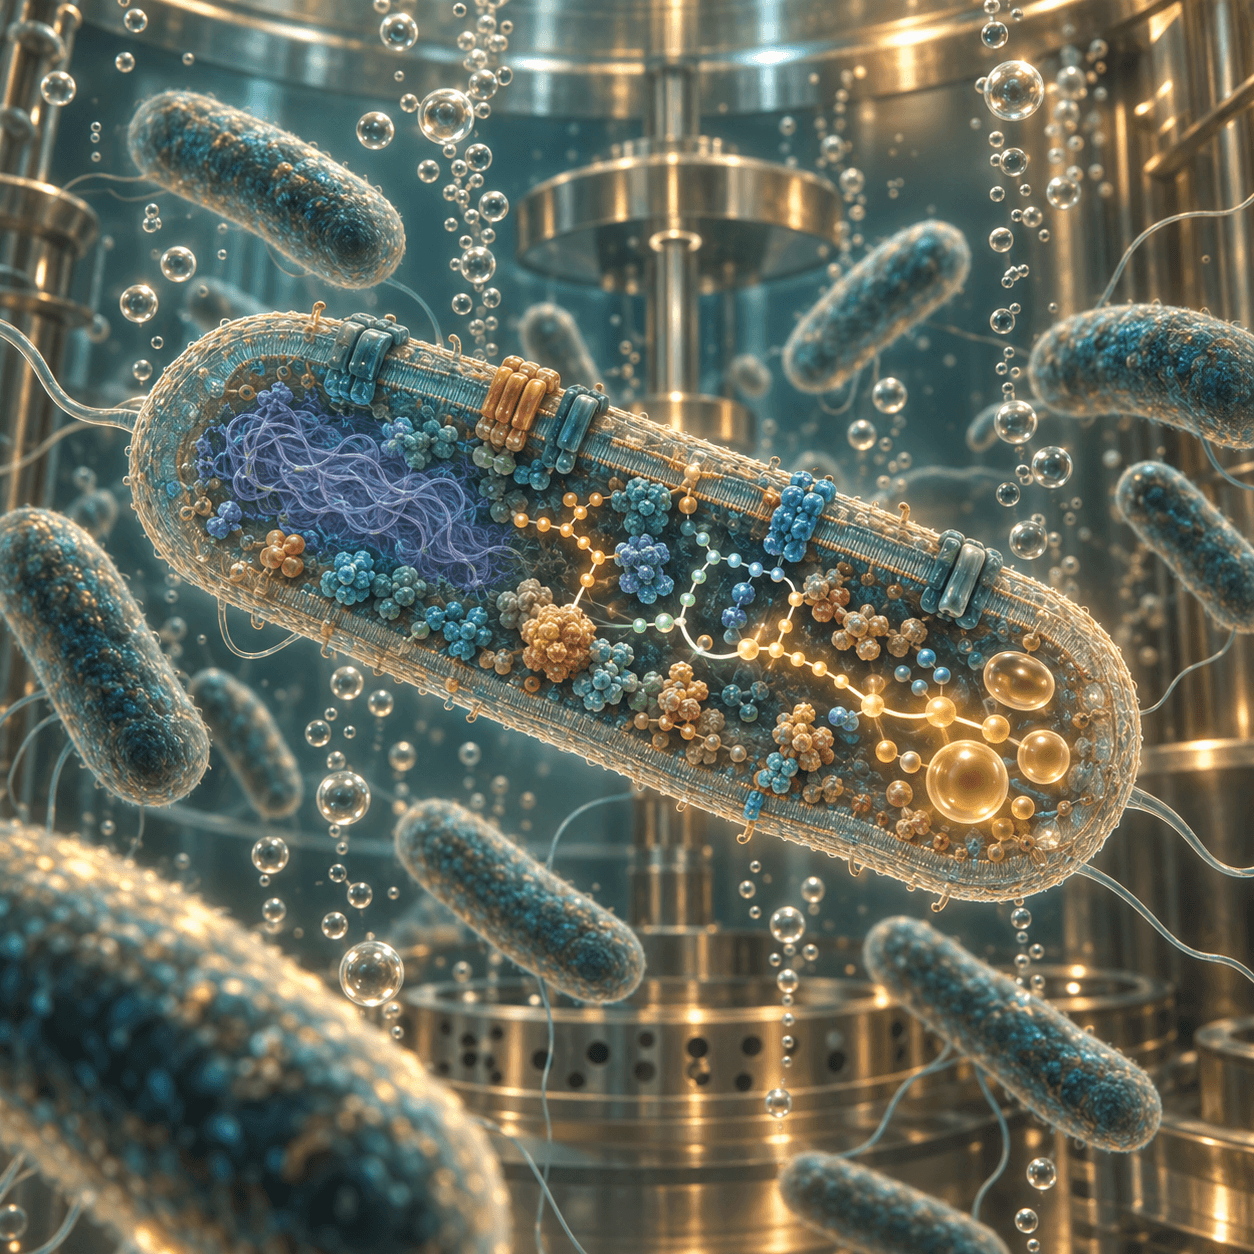
일산화탄소와 이산화탄소는 탄소 원자가 하나뿐이라 세포 물질을 만들기 위한 출발점으로 쓰기 어렵다. Clostridium ljungdahlii는 이 기체들을 수소나 일산화탄소에서 얻은 전자와 결합해 아세틸 조효소 A로 만든다. 산소 없이 작동하는 우드 융달 경로 덕분에 제철소 배출가스나 바이오매스 가스화에서 나온 합성가스를 아세트산과 에탄올 같은 물질로 전환할 수 있다.
표준 균주 PETC는 미국 아칸소주의 닭 사육장 폐기물에서 합성가스로 에탄올을 만드는 미생물을 찾는 과정에서 분리됐고 1993년 신종으로 기재됐다. 현재 LPSN이 수록한 유효한 정명이며 표준 균주는 PETC, DSM 13528, ATCC 55383이다. 원 기재에 적힌 ATCC 49587은 이후 다른 번호로 바로잡혔으므로 오래된 자료의 기탁번호를 그대로 사용하면 안 된다.
산소가 없는 반응조에서 기체를 탄소원으로 이용한다
PETC 세포는 길쭉한 막대형이며 편모로 움직이고 조건에 따라 내생포자를 만들 수 있다. 산소가 있으면 정상적으로 성장하지 못하는 절대혐기성 세균으로 약 37도와 중성에 가까운 pH에서 흔히 배양된다. 당과 유기산을 발효할 수도 있지만 이 종을 특별하게 만든 성질은 이산화탄소와 수소 또는 일산화탄소만으로 세포 물질을 만드는 독립영양 성장이다.
합성가스는 원료와 가스화 방식에 따라 일산화탄소, 수소, 이산화탄소의 비율이 달라진다. 일산화탄소는 탄소원이면서 전자공여체가 될 수 있고, 이산화탄소를 주된 탄소원으로 쓸 때에는 수소가 환원력을 제공한다. 세균은 기체와 액체가 만나는 표면에서만 기질을 받을 수 있으므로 생화학적 능력만큼 기체의 용해와 전달속도가 중요하다.
일산화탄소 농도가 높으면 더 많은 원료를 공급할 수 있지만 세포의 금속 효소를 억제할 수 있다. 반대로 기체를 약하게 공급하면 세포가 처리할 수 있어도 생산량이 낮아진다. 교반과 압력을 높이면 물질전달은 개선되지만 에너지 소비와 설비 비용이 늘어난다. 배양병에서 확인한 생산농도를 대형 반응조의 성능으로 그대로 바꿔 말할 수 없는 이유다.
우드 융달 경로는 두 갈래의 탄소를 하나로 합친다
우드 융달 경로에는 메틸 가지와 카보닐 가지가 있다. 메틸 가지에서는 이산화탄소가 여러 차례 환원돼 메틸기가 되고 엽산 계열 보조인자를 따라 이동한다. 카보닐 가지에서는 일산화탄소 탈수소효소가 이산화탄소를 일산화탄소로 환원하거나 외부에서 들어온 일산화탄소를 이용한다. 마지막에는 아세틸 조효소 A 합성효소가 메틸기, 일산화탄소와 조효소 A를 결합한다.
생성된 아세틸 조효소 A는 세포 성분을 만드는 중심 재료이면서 아세트산과 에탄올 생산의 분기점이다. 아세트산이 만들어질 때에는 기질수준 인산화로 ATP를 확보할 수 있다. 에탄올 쪽으로 탄소를 보내면 환원력을 소비하지만 아세트산 경로처럼 직접적인 ATP 획득 단계는 제공하지 않는다. 세균은 성장에 필요한 에너지와 환원 상태에 맞춰 두 산물의 비율을 조절한다.
우드 융달 경로 자체에서 얻는 에너지는 매우 적다. PETC는 Rnf 막 복합체를 통해 전자의 이동을 이온 농도 차이와 연결하고 ATP 합성효소가 이 차이를 이용하게 한다. 따라서 탄소고정 효소만 다른 생산균에 넣는다고 같은 기체 발효가 완성되는 것은 아니다. 전자 운반체의 재생과 막 에너지 보존, 금속 보조인자의 조립까지 함께 맞아야 한다.
큰 유전체는 기체 발효를 여러 화학제품으로 확장할 기반이다
2010년 분석된 PETC 유전체는 4,630,065염기쌍의 원형 염색체로 구성되며 4천 개가 넘는 유전자가 예측됐다. 우드 융달 경로와 Rnf 복합체, 당 발효, 편모와 포자 형성에 관련된 유전자들이 포함된다. 당시 분석은 이 세균이 기체뿐 아니라 과당, 포도당과 여러 유기 기질을 이용하고 환경 변화에 맞춰 탄소 흐름을 조절할 수 있음을 보여줬다.
아세틸 조효소 A와 피루브산은 다양한 화학물질로 이어지는 대사 교차점이다. 유전자 조작을 통해 부탄올과 아세톤, 젖산이나 다른 유기산으로 탄소 흐름을 돌리는 연구가 진행됐다. 그러나 변형 균주에서 생산된 물질을 야생형 PETC의 자연 산물로 설명해서는 안 된다. 일부 경로를 강화하면 원하는 물질은 늘어도 세포 성장과 ATP 확보가 불리해질 수 있다.
유전체에 경로가 있다는 사실과 산업적으로 충분한 농도의 물질을 만든다는 사실도 다르다. 기체 조성과 배지의 금속, pH, 산물 독성에 따라 경로의 실제 흐름이 달라진다. 에탄올과 유기산이 쌓이면 세포막과 세포 내부 산도에 부담을 주므로 생산과 동시에 산물을 회수하는 공정도 검토해야 한다.
배출가스를 자원으로 바꾸려면 공정 전체의 탄소를 계산해야 한다
기체 발효는 당이나 전분을 주원료로 삼지 않고 산업 부생가스와 폐기물 유래 합성가스를 사용할 수 있다는 장점이 있다. 불순물이 제거된 일산화탄소와 이산화탄소를 반응조에 공급하면 세균이 상온에 가까운 조건에서 화학 전환을 수행한다. 고온 촉매공정보다 낮은 압력에서 운전할 가능성도 있지만 세균이 견딜 수 없는 타르와 황, 질소 화합물을 미리 제거해야 한다.
이산화탄소를 사용했다는 사실만으로 생산물이 탄소중립이 되는 것은 아니다. 수소가 화석연료에서 만들어졌는지, 가스 압축과 교반에 어떤 전력을 썼는지, 산물 분리 과정에서 얼마나 많은 열이 필요한지를 포함해야 한다. 생산물이 연료로 사용되면 탄소는 다시 대기로 돌아오므로 영구 저장과 탄소 재활용도 구분해야 한다.
C. ljungdahlii를 살펴보며 흥미로웠던 것은 탄소고정의 효율보다 세포가 빠듯한 에너지 장부를 맞추는 방식이었다. 세균은 기체 탄소를 아세틸 조효소 A로 모으지만 성장하려면 일정량을 아세트산 경로에 보내 ATP를 확보해야 한다. 원하는 제품으로 탄소를 많이 돌리는 것과 살아 있는 촉매를 유지하는 일이 충돌할 수 있다는 점이 보인다. 내게는 이 균주의 산업적 가치가 탄소를 붙잡는 능력 하나보다 생산과 생존 사이의 균형을 어디까지 조절할 수 있는지에 달린 것으로 느껴진다.
참고자료
- Tanner, R. S., Miller, L. M., Yang, D., Clostridium ljungdahlii sp. nov., an acetogenic species in clostridial rRNA homology group I, International Journal of Systematic Bacteriology, 1993, 43권, 2호, 232-236쪽. 원문 정보 보기
- Köpke, M. 외, Clostridium ljungdahlii represents a microbial production platform based on syngas, Proceedings of the National Academy of Sciences, 2010, 107권, 29호, 13087-13092쪽. 원문 보기
- Leang, C. 외, A genetic system for Clostridium ljungdahlii, a biocatalyst for production of fuels and chemicals from syngas and waste gas, Applied and Environmental Microbiology, 2013, 79권, 4호, 1102-1109쪽. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, Clostridium ljungdahlii, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 독특한 당 분해 경로로 에탄올을 빠르게 만드는 세균 (0) | 2026.09.28 |
|---|---|
| 세균이 얼음 결정을 만들면 식물과 구름에는 어떤 일이 생길까? (0) | 2026.09.27 |
| 해조류의 복잡한 다당류를 분해하는 조벨리아의 효소 전략 (0) | 2026.09.25 |
| 뜨거운 바다에서 겉옷 같은 막을 두른 세균은 어떻게 살아갈까? (0) | 2026.09.24 |
| 옐로스톤 온천 세균의 효소는 어떻게 PCR을 바꿨을까? (0) | 2026.09.23 |