
티스토리 뷰
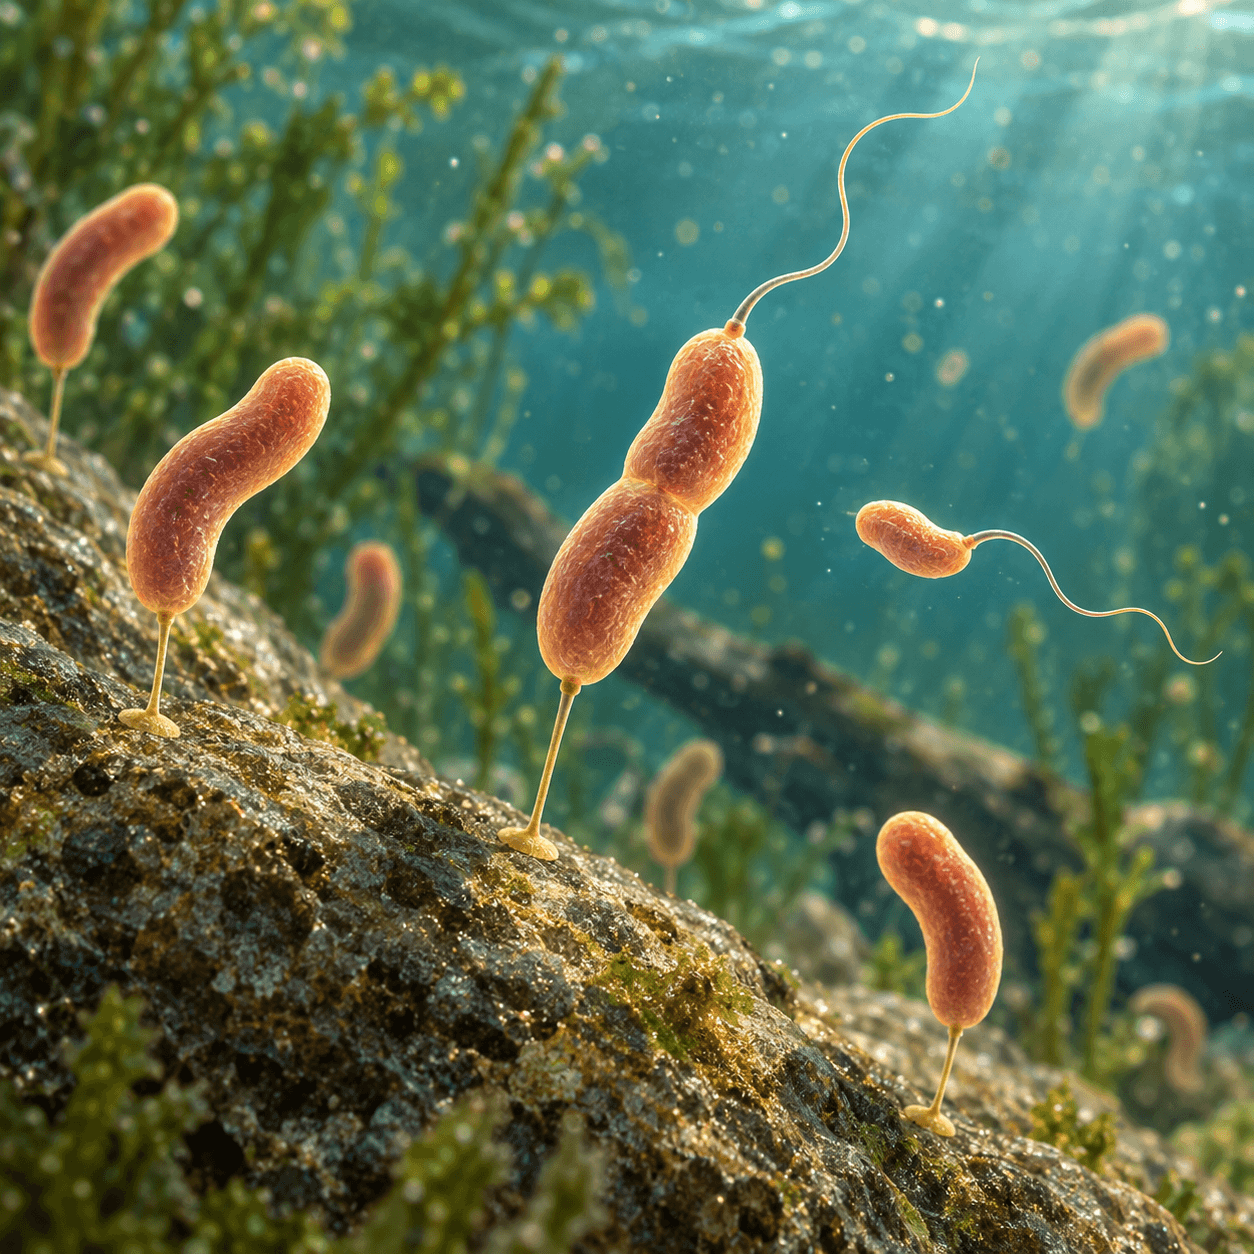
세균의 이분법은 같은 모세포가 비슷한 두 딸세포로 갈라지는 과정처럼 보인다. 그러나 Caulobacter crescentus CB15는 한쪽에 자루가 달린 부착세포와 반대쪽에 편모가 달린 유영세포를 동시에 만든다. 두 딸세포는 유전체 염기서열은 같지만 태어난 직후의 형태와 이동성, DNA 복제 가능성이 서로 다르다. 세포 안의 단백질과 신호물질이 분열 전에 양쪽 극으로 다르게 배치되기 때문이다.
CB15는 미국 캘리포니아의 수돗물에서 분리됐으며 ATCC 19089, DSM 4727, VKM B-1496 등으로 보존된다. 오래도록 Caulobacter crescentus의 표준 균주로 알려졌지만 현재 LPSN은 이 이름을 Caulobacter vibrioides의 이명으로 처리하고 CB15를 C. vibrioides의 표준 균주로 수록한다. 기존 연구 대부분이 옛 학명을 사용하므로 실험 균주와 현재 분류명을 함께 확인하는 편이 정확하다.
유영세포는 이동하고 부착세포는 곧바로 DNA를 복제한다
분열 직후 작은 유영세포의 한쪽 끝에는 편모와 여러 섬모가 있다. 이 세포는 물속을 이동하고 표면을 탐색하지만 염색체 복제를 바로 시작하지 않는다. 일정 시간이 지나면 편모와 섬모를 잃고 같은 극에서 가느다란 자루를 만든다. 자루 끝에는 홀드패스트라는 접착성 다당류가 놓여 표면에 세포를 고정한다.
반대쪽의 부착세포는 모세포가 사용하던 자루와 접착점을 물려받는다. 분열이 끝난 뒤에도 같은 위치에 남으며 새로운 복제 주기를 곧바로 시작할 수 있다. 부착세포가 자라면 자루 반대쪽에 새 편모극이 만들어지고 세포 중간이 잘록해진다. 다음 분열에서 그 부분이 새로운 유영세포가 된다.
두 상태는 움직이는 세포와 고정된 세포 사이의 단순한 외형 차이가 아니다. 유영세포에서는 복제 개시가 억제되고 분산에 필요한 편모와 주화성 장치가 작동한다. 부착세포에서는 DNA 복제와 세포 성장, 자루 형성 유전자가 활성화된다. 유영세포가 부착세포로 분화하기 전까지는 같은 유전자를 지녔어도 새로운 딸세포를 만들 수 없다.
세포 양극에 다른 조절 단백질이 배치된다
비대칭성의 중심에는 CtrA라는 전사조절 단백질이 있다. 유영세포에서 활성화된 CtrA는 염색체 복제 시작점에 결합해 복제를 억제하고 편모와 세포분열 관련 유전자의 발현을 조절한다. 유영세포가 부착세포로 바뀔 때에는 CtrA가 선택적으로 분해돼 복제 시작점이 열린다. 새 복제 주기가 진행된 뒤에는 CtrA가 다시 만들어져 분열 전 세포의 편모 쪽 구역에서 활성을 유지한다.
DnaA는 DNA 복제를 시작하고 GcrA와 CcrM은 복제 진행과 유전자 발현, DNA 메틸화 시기를 조절한다. 이 단백질들이 일정한 순서로 나타났다 사라지면서 세포주기가 한 방향으로 진행된다. 하나의 중앙 시계가 모든 반응을 지시한다기보다 전사조절과 인산화, 단백질 분해, DNA 메틸화가 서로 연결된 회로에 가깝다.
분열 직전에는 신호 단백질과 단백질분해 장치가 양쪽 극에 다르게 자리한다. 그 결과 같은 세포질을 나눠 받더라도 한쪽에서는 CtrA가 유지되고 다른 쪽에서는 빠르게 제거된다. 분리막이 닫히는 순간 두 딸세포의 조절 상태가 이미 달라져 있는 셈이다. 세포 크기 차이만으로 서로 다른 운명이 생기는 것이 아니라 공간적으로 분리된 조절망이 형태와 복제 능력을 함께 결정한다.
자루와 접착제는 영양이 희박한 물속에서 자리를 지킨다
CB15는 영양분이 적은 담수 환경에 적응한 호기성 종속영양세균이다. 자루는 세포막과 외막, 세포벽이 함께 길어진 구조이며 끝의 접착면을 세포 몸체에서 떨어뜨린다. 과거에는 자루가 영양분 흡수 면적을 늘리는 구조로 주로 설명됐지만, 실제 기능은 표면 부착과 공간 확보, 세포주기 조절을 포함해 조건에 따라 달라질 수 있다.
홀드패스트는 물속에서도 다양한 표면에 강하게 붙는 다당류 접착체다. 2006년 단일세포 측정에서는 단위면적당 68뉴턴을 넘는 접착력이 보고됐다. 다만 이 수치는 특정 탐침과 실험 조건에서 측정된 값이다. 모든 자연 표면에서 같은 힘이 나타난다거나 정제하지 않은 홀드패스트가 곧바로 산업용 접착제를 대신할 수 있다는 뜻은 아니다.
2001년 공개된 CB15 유전체는 4,016,942염기쌍의 원형 염색체와 3,767개의 예측 유전자로 보고됐다. 영양분이 적은 환경에서 여러 용질을 감지하고 운반하는 단백질, 편모와 자루, 접착체 및 세포주기 조절 유전자가 포함됐다. 실험에는 CB15에서 유래해 배양과 유전조작이 쉬운 NA1000 균주도 널리 사용된다. NA1000의 형질을 자연 분리주 CB15의 변하지 않는 특성으로 섞지 않아야 한다.
비대칭 분열은 제한된 자리를 지키면서 새 환경을 탐색하게 한다
부착세포만 계속 만들어진다면 한 표면에서 자손끼리 공간과 영양분을 두고 경쟁하게 된다. 반대로 이동세포만 만든다면 어렵게 찾은 안정적인 자리를 매번 포기해야 한다. CB15의 분열은 기존 부착점을 유지하는 딸과 다른 장소로 퍼질 딸을 동시에 생산한다. 변화가 큰 수중 환경에서 정착과 분산을 한 세대 안에 나누는 전략이다.
이 생활사는 합성생물학에서 세포주기와 세포 극성을 연구하는 모델이 되며, 홀드패스트는 수중 접착 소재 후보로 연구된다. 그러나 조절 단백질 하나를 다른 세균에 넣는다고 비대칭 분열이 재현되지는 않는다. 단백질의 극성 배치와 선택적 분해, 세포벽 성장, 편모와 자루 조립이 시간과 공간에 맞게 연결돼야 한다.
이 세균을 정리하며 특히 인상 깊었던 것은 두 딸세포의 차이가 분열이 끝난 뒤 생기는 것이 아니라는 점이었다. 모세포는 갈라지기 전부터 한쪽에는 오래 머물 장치를, 다른 쪽에는 떠날 장치를 준비한다. 같은 DNA를 복사해 나누는 일과 같은 상태의 세포를 만드는 일은 별개다. 내게는 CB15의 세포주기가 유전정보만큼 그 정보를 어느 위치에서 언제 읽는지가 중요하다는 사실을 가장 선명하게 보여주는 사례로 느껴진다.
참고자료
- Nierman, W. C. 외, Complete genome sequence of Caulobacter crescentus, Proceedings of the National Academy of Sciences, 2001, 98권, 7호, 4136-4141쪽. 원문 보기
- Tsang, P. H. 외, Adhesion of single bacterial cells in the micronewton range, Proceedings of the National Academy of Sciences, 2006, 103권, 15호, 5764-5768쪽. 원문 보기
- Tsokos, C. G., Laub, M. T., Polarity and cell fate asymmetry in Caulobacter crescentus, Current Opinion in Microbiology, 2012, 15권, 6호, 744-750쪽. 원문 보기
- Barrows, J. M., Goley, E. D., Caulobacter crescentus as a model for bacterial cell biology, Journal of Bacteriology, 2023, 205권, 1호, e00384-22. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, Caulobacter vibrioides, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 작은 광합성 세균 Prochlorococcus marinus가 넓은 바다를 지탱하는 방식 (0) | 2026.10.03 |
|---|---|
| 하이포마이크로비움 디니트리피칸스, 가느다란 자루 끝에서 새 세포를 만드는 출아 세균 (0) | 2026.10.02 |
| 스트렙토마이세스 코엘리콜로르, 세균이 균사와 포자를 만들며 분화하는 과정 (0) | 2026.09.30 |
| 시몬시엘라 뮐레리, 사람 입안에서 납작한 세포 띠를 만드는 세균 (0) | 2026.09.29 |
| 독특한 당 분해 경로로 에탄올을 빠르게 만드는 세균 (0) | 2026.09.28 |