
티스토리 뷰
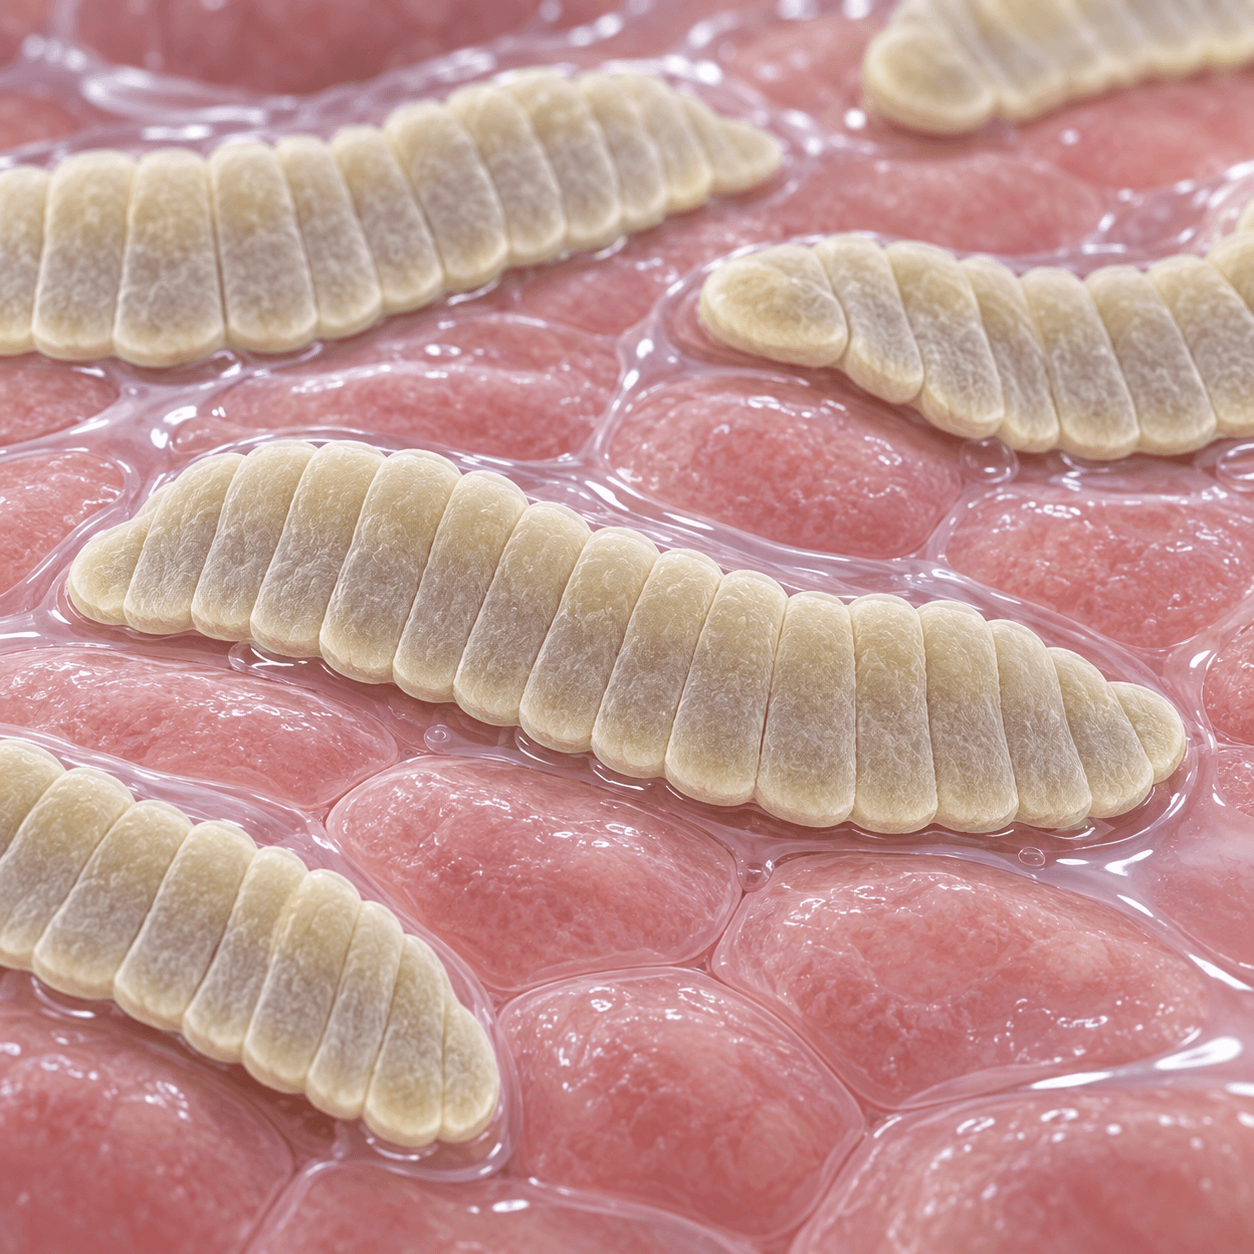
세균의 분열은 보통 긴 막대의 가운데를 가로질러 두 짧은 세포가 되는 방식이다. Simonsiella muelleri는 반대로 세포의 긴 축과 평행한 방향으로 분열한다. 분열한 세포들이 옆면을 맞댄 채 떨어지지 않아 여러 칸으로 나뉜 납작한 띠가 만들어진다. 현미경에서는 작은 막대가 이어진 사슬보다 폭이 넓은 리본이나 애벌레 같은 모습으로 관찰된다.
이 종은 1922년 처음 기술됐으며 1980년 승인 목록을 통해 명명 지위를 얻었다. LPSN은 S. muelleri를 유효하게 공표된 정명과 Simonsiella속의 기준종으로 수록한다. 1978년 사람의 구강에서 분리된 36번 균주가 기준 계통으로 제안됐으며 DSM 2579, ATCC 29453, LMG 7828 등으로 보존된다. 비슷한 형태의 동물 구강 분리주가 모두 이 종인 것은 아니므로 숙주와 균주 동정을 구분해야 한다.
여러 세포가 옆면으로 연결돼 하나의 리본처럼 보인다
개별 세포는 그람음성 외피를 가진 넓고 납작한 막대 형태다. 세포가 길이 방향으로 분열하면 새로 생긴 딸세포가 기존 띠의 옆쪽에 더해진다. 같은 과정이 반복되면서 세포들이 나란히 배열된 다세포성 필라멘트가 형성된다. 띠의 한쪽 끝은 다른 쪽보다 폭이 좁아 전체적으로 끝이 가늘어지는 형태도 나타난다.
2022년 전자현미경과 형광 표지 연구에서는 이 계통의 이웃 세포가 옆면의 펩티도글리칸을 통해 연결되는 구조가 관찰됐다. 새 세포벽은 일반적인 막대균처럼 바깥 둘레에서 중심으로 둥글게 조여 오기보다 세포 중앙에 길쭉한 판처럼 삽입됐다. 이 판이 세포를 긴 방향으로 가르면서도 양쪽 딸세포의 측면 연결은 남긴다.
모든 세포가 정확히 같은 순간에 분열하는 것은 아니다. 띠 안에서 분열 단계가 다른 세포가 함께 존재할 수 있어 폭과 윤곽이 고르지 않게 보인다. 분열면의 방향이 조금만 달라져도 띠가 휘거나 비틀릴 수 있다. 현미경에서 보이는 집단의 길이를 세포 한 개의 크기로 잘못 기록하지 않도록 개별 구획과 전체 필라멘트를 따로 측정해야 한다.
세포분열 장치는 그대로지만 배치되는 방향이 달라졌다
S. muelleri도 FtsZ를 비롯한 보존된 세포분열 단백질과 펩티도글리칸 합성 장치를 사용한다. 특별한 점은 전혀 새로운 분열기계를 가진 것이 아니라 기존 장치가 세포의 장축을 따라 배치된다는 데 있다. 비교유전체 연구에서는 길이 방향 분열을 하는 Simonsiella, Alysiella, Conchiformibius가 짧은 구균보다 막대형 조상에서 유래했을 가능성이 제시됐다.
길이 방향의 분열은 세포가 넓어지는 성장과 연결된다. 새 벽이 중앙의 긴 선을 따라 만들어지고 양쪽 세포가 벌어지면 필라멘트의 폭이 한 칸씩 증가한다. 이후 세포벽 연결이 재배열되면서 여러 세포로 된 리본이 유지된다. 어떤 단백질이 분열면을 정확히 돌려 놓는지와 환경 신호가 그 위치를 어떻게 조절하는지는 아직 완전히 밝혀지지 않았다.
이 형태를 일반적인 군집이나 생물막과 동일하게 볼 수도 없다. 생물막에서는 서로 다른 세포가 세포외 고분자 안에 모이지만, S. muelleri의 띠에서는 분열로 생긴 가까운 세포들이 정돈된 방향성과 물리적 연결을 유지한다. 그렇다고 하나의 막으로 둘러싸인 다핵 세포도 아니다. 각각의 세포 구획과 외피를 가진 상태로 다세포 배열을 이루는 것이다.
입안의 상피 표면은 독특한 형태가 유지되는 생활 공간이다
Simonsiella 계통은 사람과 여러 포유류의 구강 및 상부 호흡기 표면에서 발견된다. 기준 균주 계통은 사람의 구강에서 분리됐으며 산소가 있는 조건에서 유기물을 이용해 자란다. 입안에서는 침이 흐르고 표면의 상피세포가 계속 떨어져 나가므로 한 세포가 홀로 붙어 있는 것보다 넓은 띠가 표면과 접촉하는 형태가 유지에 도움이 될 가능성이 있다.
과거에는 이 세균을 활주세균으로 분류하거나 띠 전체가 표면을 따라 이동한다고 기술한 연구가 있었다. 그러나 오래된 분류 체계와 현대의 계통 분류는 같지 않다. 현재 S. muelleri는 Neisseriaceae과에 속하며, 눈에 보이는 위치 변화가 능동적인 활주인지 침과 상피세포 이동에 따른 수동적 이동인지도 실험 조건별로 구분해야 한다.
구강에서 발견된다는 사실만으로 충치나 잇몸질환의 원인균이라고 판단할 근거는 부족하다. 건강한 숙주에서도 관찰되며 질병과의 직접적인 인과관계가 확립되지 않았다. 배양과 현미경 관찰이 쉽지 않아 구강 미생물군 분석에서 상대적으로 적게 다뤄졌을 가능성도 있다. DNA 검출량과 살아 있는 띠의 수, 상피 부착 정도는 서로 다른 지표다.
특이한 세포 배열은 분열 방향이 어떻게 진화하는지 보여준다
길이 방향 분열은 세포 모양을 결정하는 기본 규칙이 진화 과정에서 바뀔 수 있음을 보여준다. 일반적인 가로 분열에서는 막대의 길이가 절반으로 줄지만, 이 세균에서는 폭 방향으로 딸세포가 추가된다. 같은 세포벽 재료와 분열 단백질을 사용하면서도 공간 배치를 바꾸면 단세포 막대에서 납작한 다세포 띠로 생활 형태가 달라질 수 있다.
유전체 데이터베이스에는 ATCC 29453 계통의 약 237만 염기쌍 조립 자료가 등록돼 있다. 이 자료는 다른 Neisseriaceae와 세포분열 및 세포벽 유전자를 비교하는 데 유용하지만, 서열만으로 분열면의 실제 방향을 확인할 수는 없다. 형광 아미노산으로 새 펩티도글리칸의 위치를 표시하고 전자현미경으로 연결 부위를 관찰해야 유전정보와 형태를 이어 설명할 수 있다.
특이한 형태를 모방해 미세구조를 만드는 응용 가능성도 생각할 수 있지만 아직은 세포분열과 다세포성 진화를 연구하는 기초 모델의 의미가 더 크다. 구강 환경에 적용하려면 배양 조건과 숙주 특이성, 정상 미생물군과의 관계가 먼저 밝혀져야 한다.
이 세균을 보며 가장 신기했던 점은 납작한 띠가 세포들이 우연히 포개진 결과가 아니라는 사실이었다. 분열 방향이 바뀌고 딸세포가 옆면 연결을 유지해야만 반복되는 무늬가 생긴다. 입안처럼 표면이 계속 벗겨지고 침이 흐르는 장소에서 이 배열이 어떤 이점을 주는지는 아직 가설의 영역이다. 그래도 세균의 모양이 단순한 외형이 아니라 어디에서 살아남고 어떤 방향으로 자손을 늘릴지를 반영한다는 점만큼은 분명하게 느껴진다.
참고자료
- Kuhn, D. A., Gregory, D. A., Emendation of Simonsiella muelleri Schmid and description of Simonsiella steedae sp. nov., with designations of the respective proposed neotype and holotype strains, Current Microbiology, 1978, 1권, 1호, 11-14쪽. 원문 보기
- Nyby, M. D. 외, Incidence of Simonsiella in the oral cavity of dogs, Journal of Clinical Microbiology, 1977, 6권, 1호, 87-88쪽. 원문 보기
- Nyongesa, S. 외, Evolution of longitudinal division in multicellular bacteria of the Neisseriaceae family, Nature Communications, 2022, 13권, 4853. 원문 보기
- List of Prokaryotic names with Standing in Nomenclature, Simonsiella muelleri, 2026년 9월 확인. 분류 정보 보기
'박테리아' 카테고리의 다른 글
| 카울로박터 크레센투스, 한 번의 분열로 서로 다른 두 딸세포가 생기는 이유 (0) | 2026.10.01 |
|---|---|
| 스트렙토마이세스 코엘리콜로르, 세균이 균사와 포자를 만들며 분화하는 과정 (0) | 2026.09.30 |
| 독특한 당 분해 경로로 에탄올을 빠르게 만드는 세균 (0) | 2026.09.28 |
| 세균이 얼음 결정을 만들면 식물과 구름에는 어떤 일이 생길까? (0) | 2026.09.27 |
| 합성가스와 이산화탄소로 화학 원료를 만드는 세균 Clostridium ljungdahlii (0) | 2026.09.26 |